基因MUTYH:氧化性DNA损伤修复与肿瘤遗传风险
- boke
- 2026-11-17
- 10:00 上午
MUTYH基因
MUTYH(mutY DNA glycosylase)位于1号染色体短臂1p34.1,基因组跨度约11.2 kb,包含16个外显子。该基因编码参与氧化性DNA损伤修复的DNA糖基化酶,蛋白定位于细胞核和线粒体,可识别并切除与8-氧代鸟嘌呤(8-oxoG)形成错配的腺嘌呤。MUTYH双等位基因胚系致病变异可导致常染色体隐性遗传的MUTYH相关息肉病(MUTYH-associated polyposis,MAP),增加结直肠腺瘤和结直肠癌风险。MUTYH中Pathogenic(致病)位点为177个,Likely pathogenic(可能致病)位点为150个;Pathogenic/Likely pathogenic合并分类另有93个位点。
MUTYH基因的发现史
MUTYH的发现始于对氧化性DNA损伤修复机制的研究。研究者首先在大肠杆菌中发现,MutY能够识别8-氧代鸟嘌呤(8-oxoG)与腺嘌呤形成的错配,并切除其中错误掺入的腺嘌呤,从而减少氧化损伤引起的G:C→T:A颠换。这一发现提示,人体细胞中可能也存在识别相同错配、维持基因组稳定性的MutY同源蛋白,为寻找人类对应基因提供了直接线索。
1996年,研究者从人基因组和cDNA文库中克隆出大肠杆菌mutY的人类同源基因hMYH,后统一命名为MUTYH。该基因包含16个外显子,编码与大肠杆菌MutY具有序列同源性的蛋白,并被定位于1号染色体短臂。这项研究完成了MUTYH基因的鉴定、结构分析和染色体定位,为后续研究其与氧化性DNA损伤修复及遗传性肿瘤易感之间的联系奠定了基础[1]。
MUTYH与遗传性肿瘤易感的联系在2002年得到关键证据。Al-Tassan等研究了一个APC基因未检出明确致病变异的家族性腺瘤性息肉病样家系,发现患者结直肠肿瘤中的APC体细胞失活变异以G:C→T:A颠换为主。由于这一突变模式符合氧化性DNA损伤修复异常的特征,研究者进一步分析了MUTYH,发现患者携带两个不同的MUTYH胚系错义变异,呈复合杂合状态;相应的MutY同源变异蛋白对错配腺嘌呤的切除活性明显下降。由此,MUTYH修复缺陷、下游APC体细胞变异和遗传性结直肠肿瘤易感被联系起来,MUTYH相关息肉病(MUTYH-associated polyposis,MAP)的分子基础得以确立。MUTYH也由此从一个被鉴定的人类MutY同源基因,成为连接氧化性DNA损伤修复与遗传性结直肠肿瘤易感的重要基因[2]。
MUTYH蛋白的经典氧化性DNA损伤修复功能
细胞氧化代谢可使鸟嘌呤形成8-氧代鸟嘌呤(8-oxoG)。人类细胞中,MTH1主要清除氧化的脱氧核苷三磷酸,减少受损核苷酸被掺入DNA;OGG1主要识别并切除8-oxoG:C碱基对中的8-oxoG;MUTYH则主要处理复制后形成的8-oxoG:A错配,切除其中错误配对的腺嘌呤。MUTYH切除腺嘌呤后形成脱嘌呤/脱嘧啶位点,随后由碱基切除修复通路继续处理;OGG1则主要负责处理8-oxoG:C碱基对中的8-oxoG。上述分工共同减少氧化损伤引起的G:C→T:A颠换[3][4][6]。
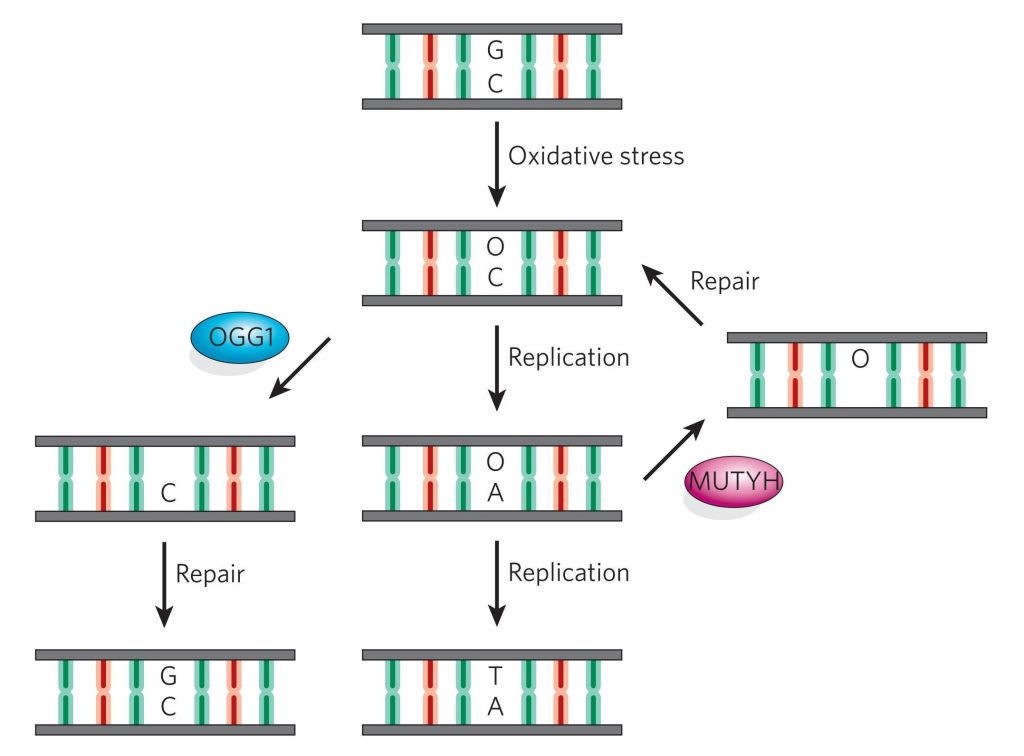
图1. OGG1与MUTYH在8-氧代鸟嘌呤相关碱基切除修复中的分工。OGG1主要切除8-oxoG:C中的8-oxoG,MUTYH主要切除8-oxoG:A中的腺嘌呤,后续由碱基切除修复通路完成修复[3]。
MUTYH的关键特点并不是直接切除受损的8-oxoG,而是识别8-oxoG:A错配并切除其中错误掺入的腺嘌呤。现有研究显示,MUTYH对8-oxoG:A具有明显偏好;虽然纯化蛋白在体外也可处理A:G错配,但在细胞环境中的处理效率很低。因此,不能将MUTYH笼统表述为能够高效修复所有G:A错配[3][5][6]。
MUTYH蛋白的结构调控与MAP机制
MUTYH通过识别结构识别8-oxoG:A错配,并使错配中的腺嘌呤进入催化口袋。2026年的结构综述在早期MutY结构和生化模型的基础上提出,MUTYH中的FSH环参与识别8-oxoG在错配中的结构特征;人MUTYH的[4Fe-4S]簇可通过变构方式调节催化残基Asp236的定位和质子化状态,锌连接区域可能参与不同结构区域之间的稳定与调控。关于金属配位和结构调控的具体模型,现有研究仍依据不同结构和生化证据进行解释[3][5][6]。
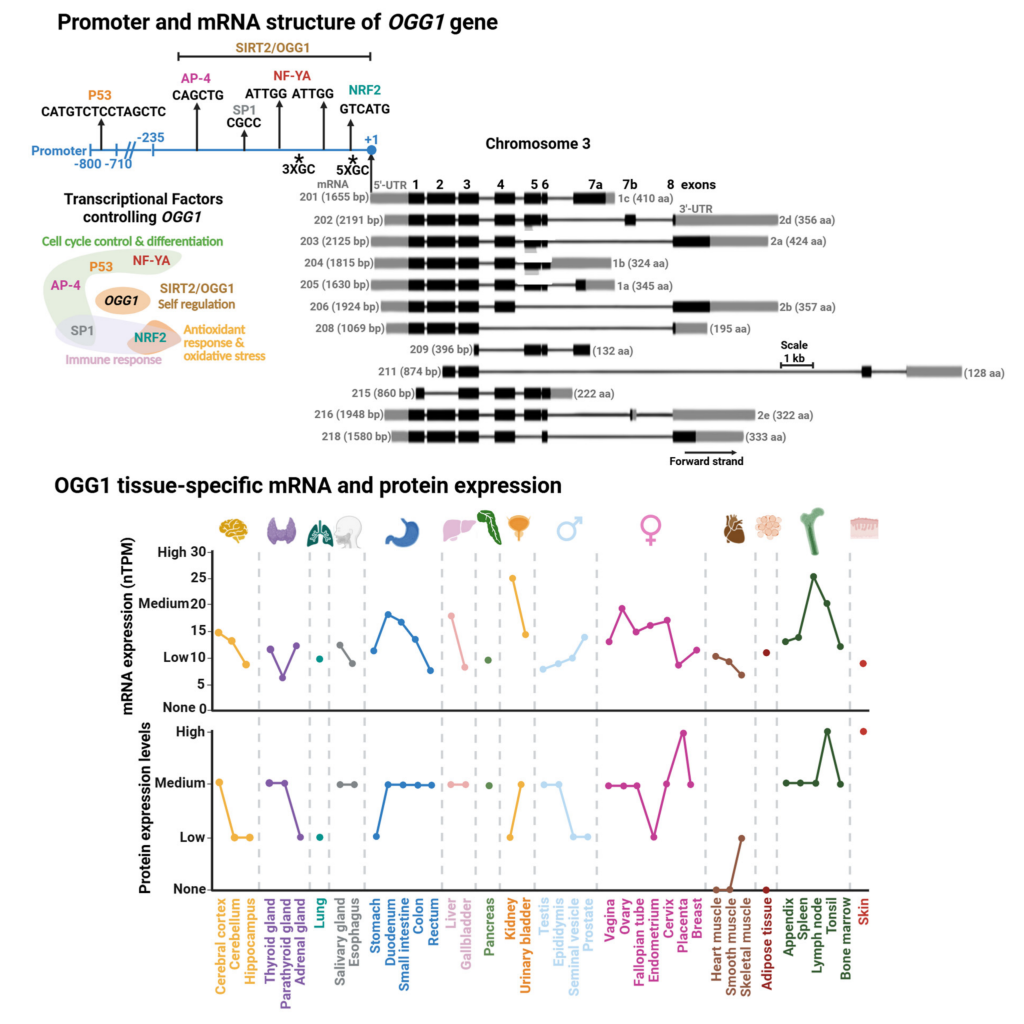
图2. MUTYH蛋白结构域、催化区域及相关蛋白相互作用网络。图中展示MUTYH的主要功能结构域、DNA结合与催化区域,以及部分参与DNA损伤应答的蛋白相互作用关系;图示相互作用仍需结合具体细胞类型和实验条件解释[6]。
MUTYH切除腺嘌呤后,APE1等蛋白参与后续DNA链处理。最新综述将8-oxoG:C的修复概括为以OGG1为起点的短补丁修复,将8-oxoG:A的后续处理概括为以MUTYH为起点、可由Polλ、FEN1及DNA连接酶参与的长补丁修复。MUTYH还可与错配修复蛋白、PCNA、9-1-1复合体、APE1及其他DNA损伤应答因子发生相互作用,从而影响底物识别、蛋白稳定性和修复复合体的动态组装[3][5][6]。
MUTYH除经典的8-oxoG:A错配修复功能外,还可能参与氧化应激下的DNA损伤应答。研究提示,MUTYH可影响单链DNA断裂、PARP相关信号及细胞死亡反应。这些非经典作用具有细胞类型、损伤条件和实验模型依赖性,目前主要作为MUTYH功能研究中的扩展机制进行讨论[5][6]。
当MUTYH双等位基因胚系致病变异削弱蛋白功能时,8-oxoG:A错配的修复效率下降,DNA复制过程中更容易保留G:C→T:A颠换。APC等基因因此更容易发生体细胞失活变异,推动腺瘤性息肉形成;在部分患者中,结直肠癌也可在息肉数量较少甚至缺乏典型息肉病表现时出现。MUTYH缺陷通过增加氧化性DNA损伤相关突变的累积,促进遗传性结直肠肿瘤易感表型形成[2][3][4][5]。
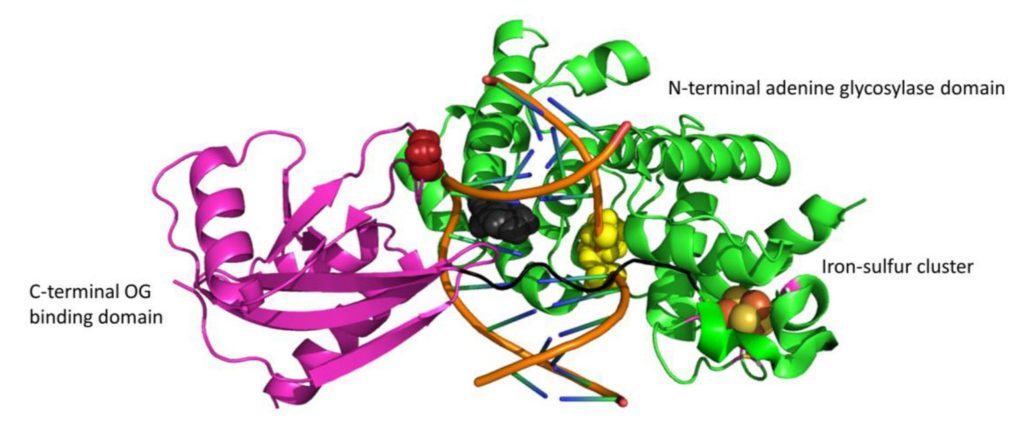
图3. MutY同源蛋白结构域及代表性MAP相关变异位置。图中展示腺嘌呤糖基化酶区域、结构连接区域、C端区域和铁硫簇,并标示部分与MAP相关的变异位置[5]。
MAP通常表现为数量和严重程度可变的结直肠腺瘤性息肉病,部分患者可伴有增生性息肉、无蒂锯齿状病变或传统锯齿状腺瘤。双等位基因状态是解释MAP遗传风险的关键;单等位基因携带不能直接等同于MAP,其风险应结合本人、一级亲属的结直肠癌或息肉史以及所采用指南进行判断。不同研究和指南对单等位基因携带者风险的结论并不完全一致,不能用一个固定倍数概括所有人群[4][8][9][10][11]。
MUTYH基因检测在临床实践中的应用
MUTYH检测主要用于具有多发腺瘤、早发结直肠癌、APC未检出明确致病变异,或家族中存在类似息肉病和结直肠癌聚集表现的个体。中国相关共识将MUTYH纳入遗传性结直肠癌和息肉病的检测框架;对于表型重叠、家族史复杂或尚无明确致病基因的患者,可采用包含MUTYH、APC及其他息肉病相关基因的多基因检测[7][8][9][10][11]。
检测结果的解释首先要区分双等位基因和单等位基因状态。双等位基因致病或可能致病变异,在相应的腺瘤性息肉病或结直肠癌表型下支持MUTYH相关息肉病(MAP)的判断;单个MUTYH致病或可能致病变异只能说明携带状态,不能直接诊断MAP。若患者具有明显的息肉病表型,却只检出一个MUTYH致病变异,不能将全部表型归因于单等位基因携带,还应结合检测范围、变异类型、个人及家族史,继续评估APC及其他相关基因。临床意义未明变异不能单独用于诊断MAP、推断亲属风险或开展预测性家系检测;未检出明确致病变异也不能排除其他基因、检测范围之外的变异或尚未明确的遗传机制[9][10][11][12]。
对于已检出明确MUTYH致病或可能致病变异的先证者,家系检测应围绕已确认的家族变异开展。定向检测有助于区分亲属的双等位基因状态、单等位基因携带状态和未携带状态,避免仅凭是否患病或是否有息肉推断遗传结果。MAP符合常染色体隐性遗传:若先证者的两个致病变异分别位于不同等位基因,其同胞理论上有25%的概率携带两个变异、50%的概率携带其中一个变异、25%的概率不携带这两个变异。先证者子女通常至少获得一个MUTYH变异,但是否形成双等位基因状态还取决于另一亲本是否携带致病变异,因此家系遗传咨询还应结合亲属检测和生育相关风险进行解释[7][13]。
对于单等位基因携带者,现有研究和指南的风险结论并不完全一致,不能脱离个人和家族史简单概括为一个固定数值,也不能直接套用双等位基因MAP患者的管理方式。若患者同时具有明显息肉病表型,应继续结合检测范围和其他息肉病相关基因进行评估[4][8][9][10][11]。
MUTYH相关肿瘤遗传风险的判断不能只依据基因结果,还需结合腺瘤数量和类型、结直肠癌发生情况、发病年龄及家族史。中国共识和指南、NCCN第1.2026版以及2024年欧洲指南均将双等位基因状态作为MAP风险评估的核心,但在结肠镜起始年龄、上消化道检查时间和随访安排等方面存在差异。因此,检测报告应同时写明变异状态、证据等级和适用的临床背景,再结合现行指南进行风险评估和家系管理[7][8][10][13]。
总结
MUTYH基因编码参与氧化性DNA损伤修复的DNA糖基化酶,主要识别并切除8-oxoG:A错配中的腺嘌呤。MUTYH双等位基因胚系致病变异可使G:C→T:A颠换增加,并与MAP及结直肠癌遗传易感相关。MUTYH检测的临床解释必须区分双等位基因和单等位基因状态,并结合个人表型、家族史及其他息肉病基因检测结果进行判断。对于具有多发腺瘤、APC阴性、早发结直肠癌或隐性遗传家系特征者,MUTYH应纳入遗传性结直肠癌和息肉病的综合检测框架;明确家系变异后,家属检测和遗传咨询是风险评估的重要组成部分。
参考文献:
[1] Slupska MM, Baikalov C, Luther WM, Chiang JH, Wei YF, Miller JH. Cloning and sequencing a human homolog (hMYH) of the Escherichia coli mutY gene whose function is required for the repair of oxidative DNA damage. Journal of Bacteriology, 1996, 178(13):3885–3892.
[2] Al-Tassan N, Chmiel NH, Maynard J, Fleming N, Livingston AL, Williams GT, Hodges AK, Davies DR, David SS, Sampson JR, Cheadle JP. Inherited variants of MYH associated with somatic G:C→T:A mutations in colorectal tumors. Nature Genetics, 2002, 30(2):227–232.
[3] David SS, O’Shea VL, Kundu S. Base-excision repair of oxidative DNA damage. Nature, 2007, 447(7147):941–950.
[4] Curia MC, Catalano T, Aceto GM. MUTYH: Not just polyposis. World Journal of Clinical Oncology, 2020, 11(7):428–449.
[5] Raetz AG, David SS. When you’re strange: Unusual features of the MUTYH glycosylase and implications in cancer. DNA Repair, 2019, 80:16–25.
[6] Gómez-Ramírez AP, Malek M, García-González EG, Campos SE, Brieba LG, David SS, Trasviña-Arenas CH. OGG1 and MUTYH DNA glycosylases, the dynamic duo against 8-oxoguanine DNA lesion: Structure, regulation, and novel emerging roles. Biomolecules, 2026, 16(2):257.
[7] 中国抗癌协会家族遗传性肿瘤专业委员会. 中国家族遗传性肿瘤临床诊疗专家共识(2021年版)(4)——家族遗传性结直肠癌. 中国肿瘤临床, 2022, 49(1):1–5.
[8] 国家癌症中心中国结直肠癌筛查与早诊早治指南制定专家组. 中国结直肠癌筛查与早诊早治指南(2020,北京). 中华肿瘤杂志, 2021, 43(1):16–38.
[9] 中国抗癌协会肿瘤靶向治疗专业委员会. 结直肠癌分子检测高通量测序中国专家共识. 临床肿瘤学杂志, 2021, 26(3):253–264.
[10] National Comprehensive Cancer Network. Genetic/Familial High-Risk Assessment: Colorectal, Endometrial, Esophageal, and Gastric. Version 1.2026. Plymouth Meeting, PA: National Comprehensive Cancer Network, 2026.
[11] Colas C, Bonadona V, Baert-Desurmont S, et al. MUTYH-associated polyposis: Review and update of the French recommendations established in 2012 under the auspices of the French National Cancer Institute. European Journal of Medical Genetics, 2020, 63(12):104078.
[12] 中华医学会外科学分会结直肠外科学组. 遗传性结直肠癌外科诊疗中国专家共识(2025版). 中国实用外科杂志, 2025, 45(11):1201–1217.
[13] Zaffaroni G, Mannucci A, Koskenvuo L, et al. Updated European guidelines for clinical management of familial adenomatous polyposis, MUTYH-associated polyposis, gastric adenocarcinoma and proximal polyposis of the stomach, and other rare adenomatous polyposis syndromes: a joint EHTG-ESCP revision. British Journal of Surgery, 2024, 111(5):znae070.
TargetCap® Core Exome Panel v3.0
TargetCap@ Core Exome Panel v3.0基于伯科高品质DNA探针合成技术开发,全流程国产制造,由~40万条探针组成,以GRCh38/hg38人类参考基因组设计,参考Refseq、CCDS、ClinVar等数据库,覆盖19,524个基因,目标区域为33.9Mb。
捕获性能比较
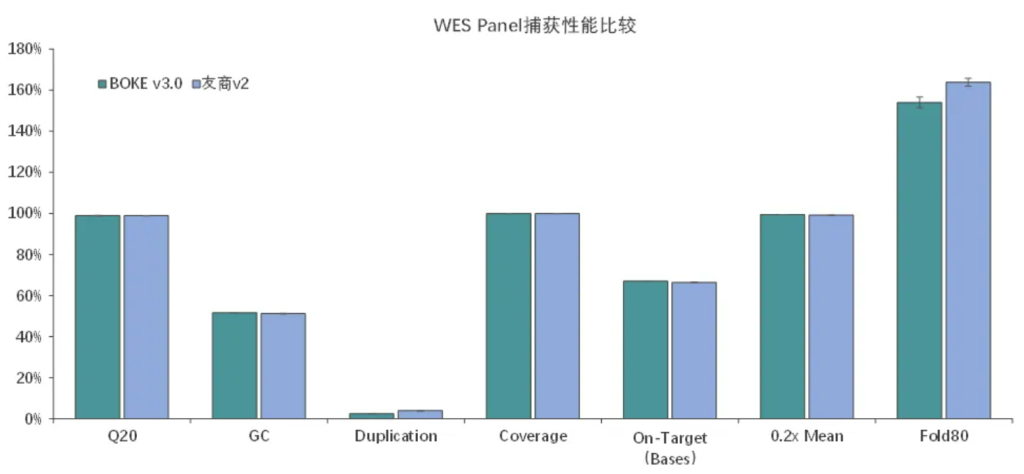
伯科全外芯片v3.0性能优异与国外友商同类型产品v2相当,中靶率、覆盖率、覆盖均一性等参数均达到国际领先水平。
适配高通量流程平台
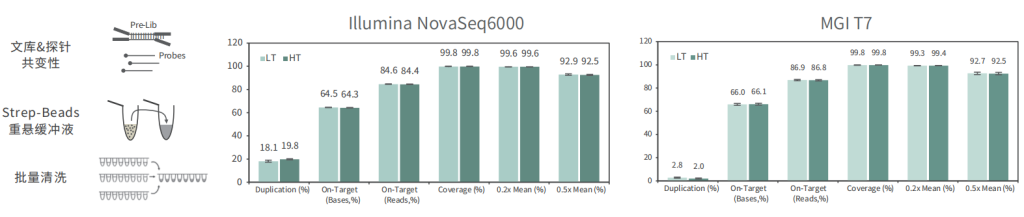
批次稳定
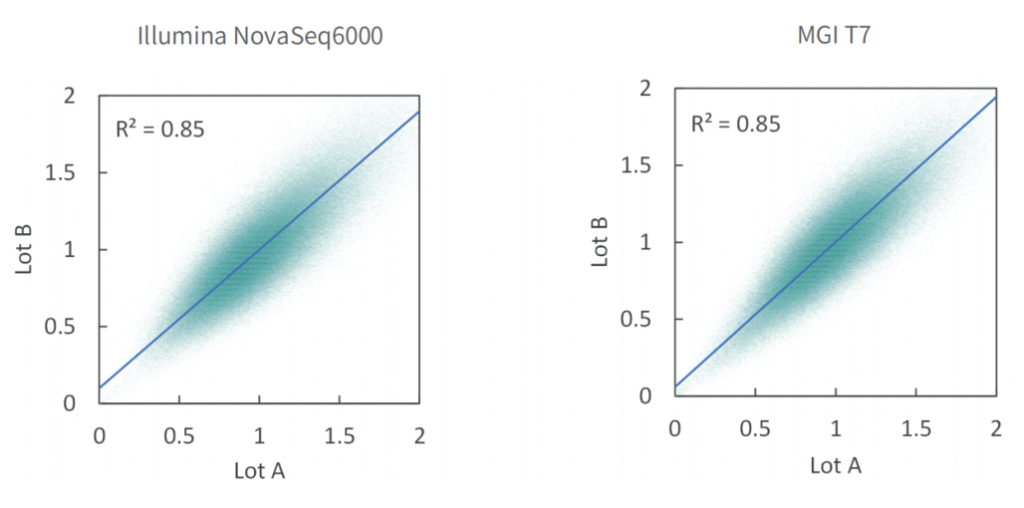
使用不同批次TargetCap® Core Exome Panel v3.0芯片对NA12878 gDNA进行捕获测序,结果显示,不同批次芯片在不同测序平台上均显示出优异的稳定性,不同位点的相对深度相关性高,批次稳定。
变异检测准确
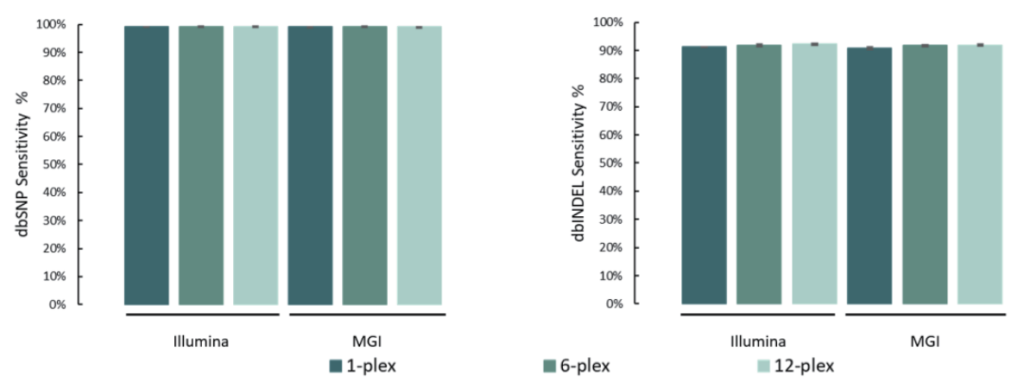
单核苷酸变异(SNV)和插入缺失 (INDEL)是基因组变异的常见形式,也是引起人类疾病的重要原因。
选取NA12878标准品,与预期SNV和INDEL变异进行比较。结果表明,在MGI与Illumina测序平台,SNP灵敏度为99.1%,INDEL灵敏度为91.6%。
添加线粒体模块临床样本表现
20例全血样本(S1#-S20#),采用1-4 Plex方式使用TargetCap® Core Exome Panel v3.0添加线粒体模块进行过夜杂交捕获;其中,S1#-S10#在Illumina NovaSeq X Plus平台测序, S11#-S20#在MGI MGISEQ-T7平台测序,均采用150PE模式测序。得到测序数据后,抽取8Gb数据进行生信分析。
两种测序平台的数据表现相近,平均深度分别为111x/115x (Illumina/MGI),中靶率优异均> 85%,覆盖均一性极佳(0.2X_MD≥99.3%);仅使用8Gb数据,高达98.5%的捕获区域达到了30X以上,99.5%的捕获区域达到20X以上,为临床样本检测提供了可靠的捕获数据。
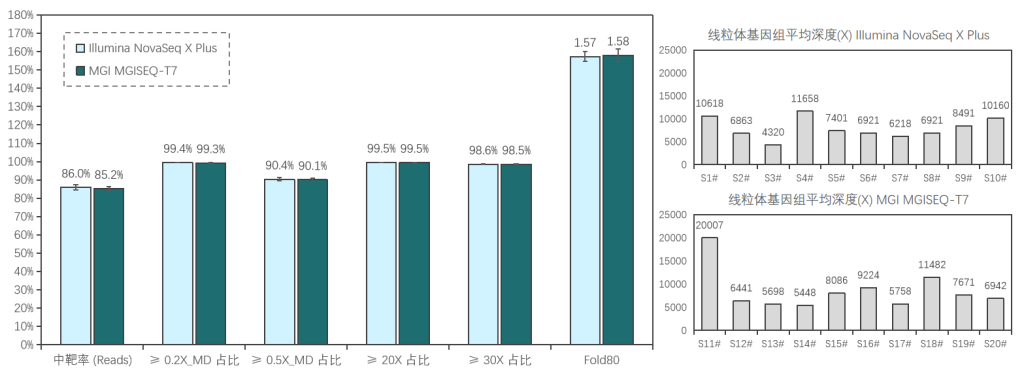
≥0.2X/0.5X_MD: Mean Depth,覆盖深度≥平均深度的0.2/0.5倍深度的区域占总区域的比例,用于表征覆盖均一性性能,越接近100%越好。
TargetCap® Core Exome Panel v7.0
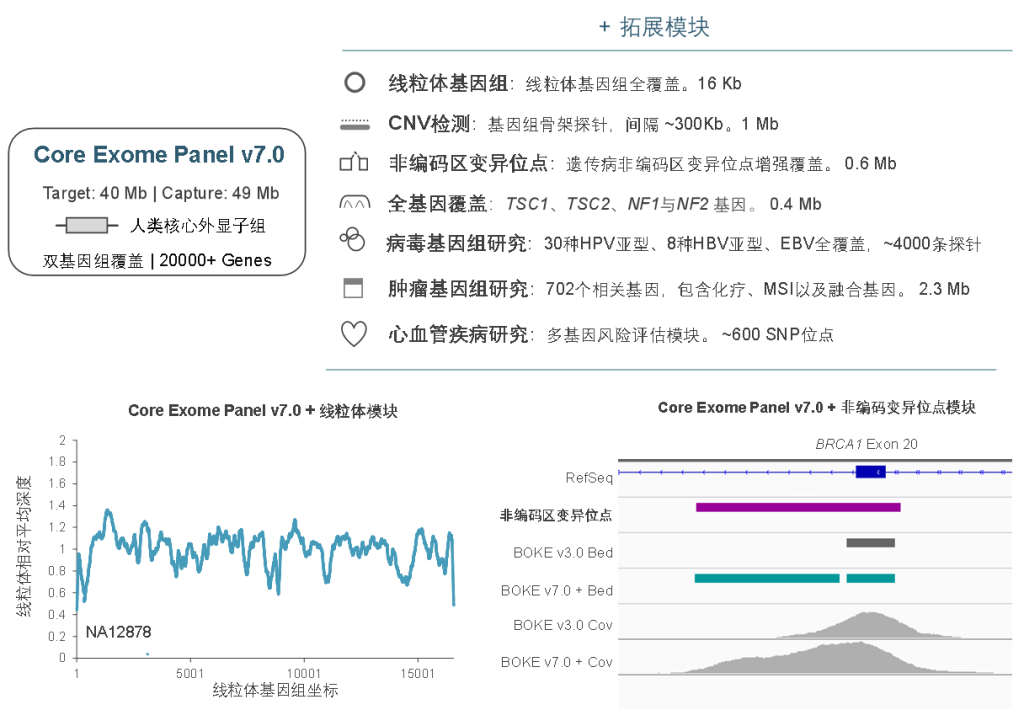
TargetCap® Core Exome Panel v7.0(下文简称BOKE v7.0),该WES Panel增强了基因组hg19传统研究区域的覆盖,兼顾 hg19 & hg38 双版本基因组,可以更好的保证临床科研与转化的延续性。目标区域和捕获区域大小分别为40Mb和49Mb,对 hg19 传统研究区域覆盖提升至99.7%(友商I-v1),hg38传统研究区域覆盖相近(友商A-v8)。同时,新添加数百个具有一定功能与表型的基因,总基因数量达到20000+。
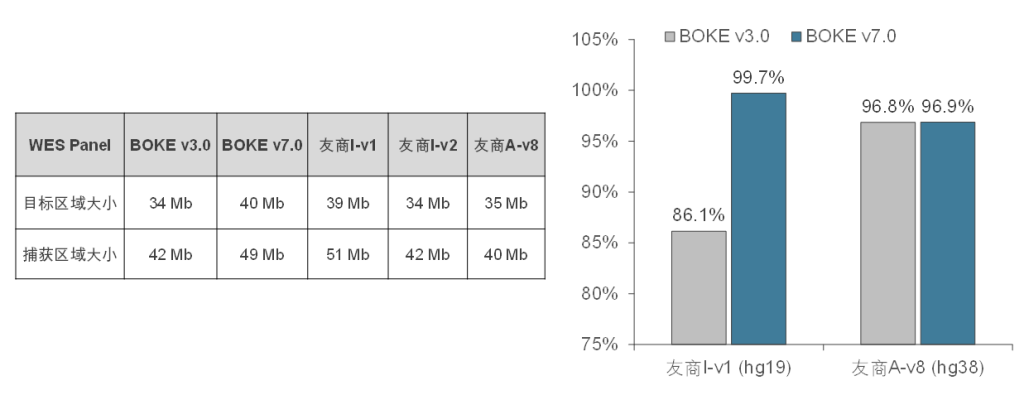
BOKE Core Exome Panel v7.0目标区域大小以及对不同友商产品目标区域的覆盖情况
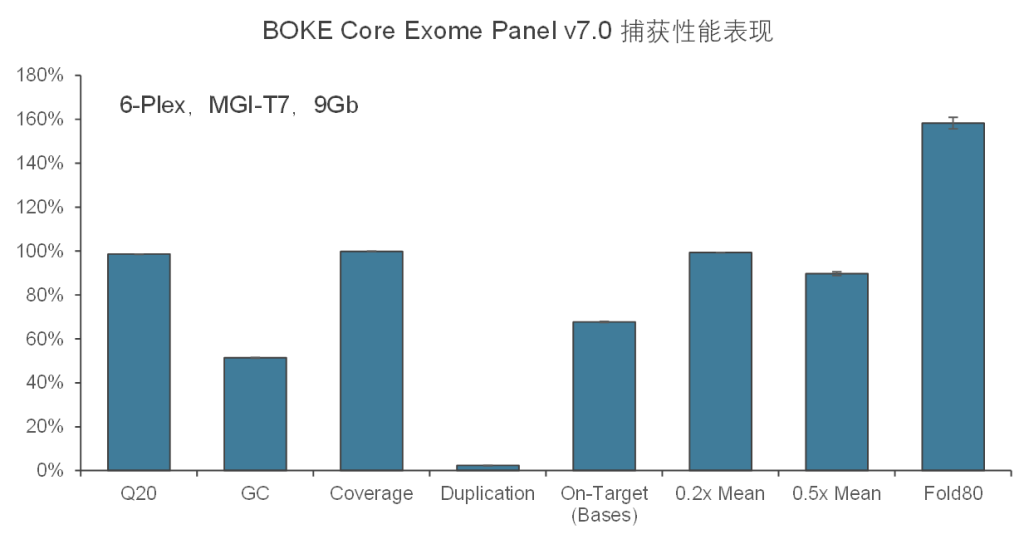
在捕获性能方面,TargetCap® Core Exome Panel v7.0依然表现优异,与TargetCap® Core Exome Panel v3.0表现相近。在测序9Gb条件下,平均深度达到110x左右,20x和30x以上区域占比分别为99.5%和98.5%,Fold 80为1.5-1.6之间,与国际领先产品数据表现相当。
同时,TargetCap® Core Exome Panel v7.0也可灵活的与拓展模块组合使用,满足不同场景的临床研究的需求及转化应用,包括线粒体、遗传病非编码区变异位点、单基因全覆盖、病毒基因组、肿瘤全景变异检测、重大疾病多基因风险评估模块等。此外,伯科公司自研自造的寡核苷酸合成平台可以快速响应个性化定制的需求,为人类基因组分子遗传学的研究与转化,提供更加全面高效的解决方案。