PALB2:从BRCA2互作蛋白到同源重组修复因子
- boke
- 2026-10-30
- 1:55 下午
PALB2基因
PALB2(partner and localizer of BRCA2)位于16号染色体短臂16p12.2,基因组跨度约38 kb,含13个外显子。其编码的蛋白可能具有肿瘤抑制作用,可与BRCA2结合并在核内损伤灶共定位,促进BRCA2在细胞核内的稳定定位和积累。PALB2相关疾病包括家族性乳腺癌和卵巢癌易感、胰腺癌易感。双等位基因PALB2致病变异可导致范可尼贫血N型(FANCN),即范可尼贫血中由PALB2异常引起的亚型。Pathogenic(致病)位点为1042个,Likely pathogenic(可能致病)位点为160个;Pathogenic/Likely pathogenic(致病/可能致病)合并分类另有246个位点。
PALB2基因的发现史
在PALB2被发现之前,BRCA2基因及其编码的BRCA2蛋白已经被认为参与遗传性乳腺癌易感和同源重组修复;BRCA2蛋白可在细胞核内与RAD51等因子协同,参与DNA双链断裂修复。2006年,Xia等在研究BRCA2的细胞内功能时鉴定出PALB2这一BRCA2结合蛋白,显示PALB2能够与BRCA2相互作用并在核内病灶共定位;当PALB2耗竭后,BRCA2的核内定位和稳定性受到影响,同源重组效率下降,RAD51病灶形成也随之受损。PALB2由此被确立为连接BRCA2细胞定位与DNA损伤修复功能的重要蛋白[1]。
2007年,Rahman等在家族性乳腺癌病例中发现PALB2截短变异:923例病例中检出10例,1084名对照中未检出。研究估计,PALB2变异携带者的乳腺癌风险约为非携带者的2.3倍(95%CI:1.4~3.9)。这一研究为PALB2作为遗传性乳腺癌易感基因提供了关键证据[2]。
2010年,Tischkowitz和Xia在综述中梳理了PALB2与范可尼贫血N型(FANCN)及成人期肿瘤易感的研究脉络:双等位基因致病变异可导致范可尼贫血N型,单等位基因致病变异则与成人期肿瘤易感相关,尤其与乳腺癌风险升高有关[3]。
PALB2蛋白在同源重组修复中的作用
PALB2基因编码的PALB2蛋白由1186个氨基酸组成,包含参与BRCA1结合的N端coiled-coil结构域、与染色质和DNA结合相关的中央区域,以及介导BRCA2结合的C端WD40结构域[4][5]。
DNA双链断裂发生末端切除后,会暴露单链DNA。PALB2将BRCA1依赖的损伤位点募集与BRCA2介导的RAD51装载衔接起来,使BRCA2能够促进RAD51核蛋白丝形成、同源序列搜索和链侵入,从而推动同源重组。PALB2本身也可结合DNA并促进重组中间体形成,但细胞内高效、受调控的RAD51装载仍依赖PALB2与BRCA2等蛋白协同。因此,PALB2并非BRCA2的替代物[4][6]。
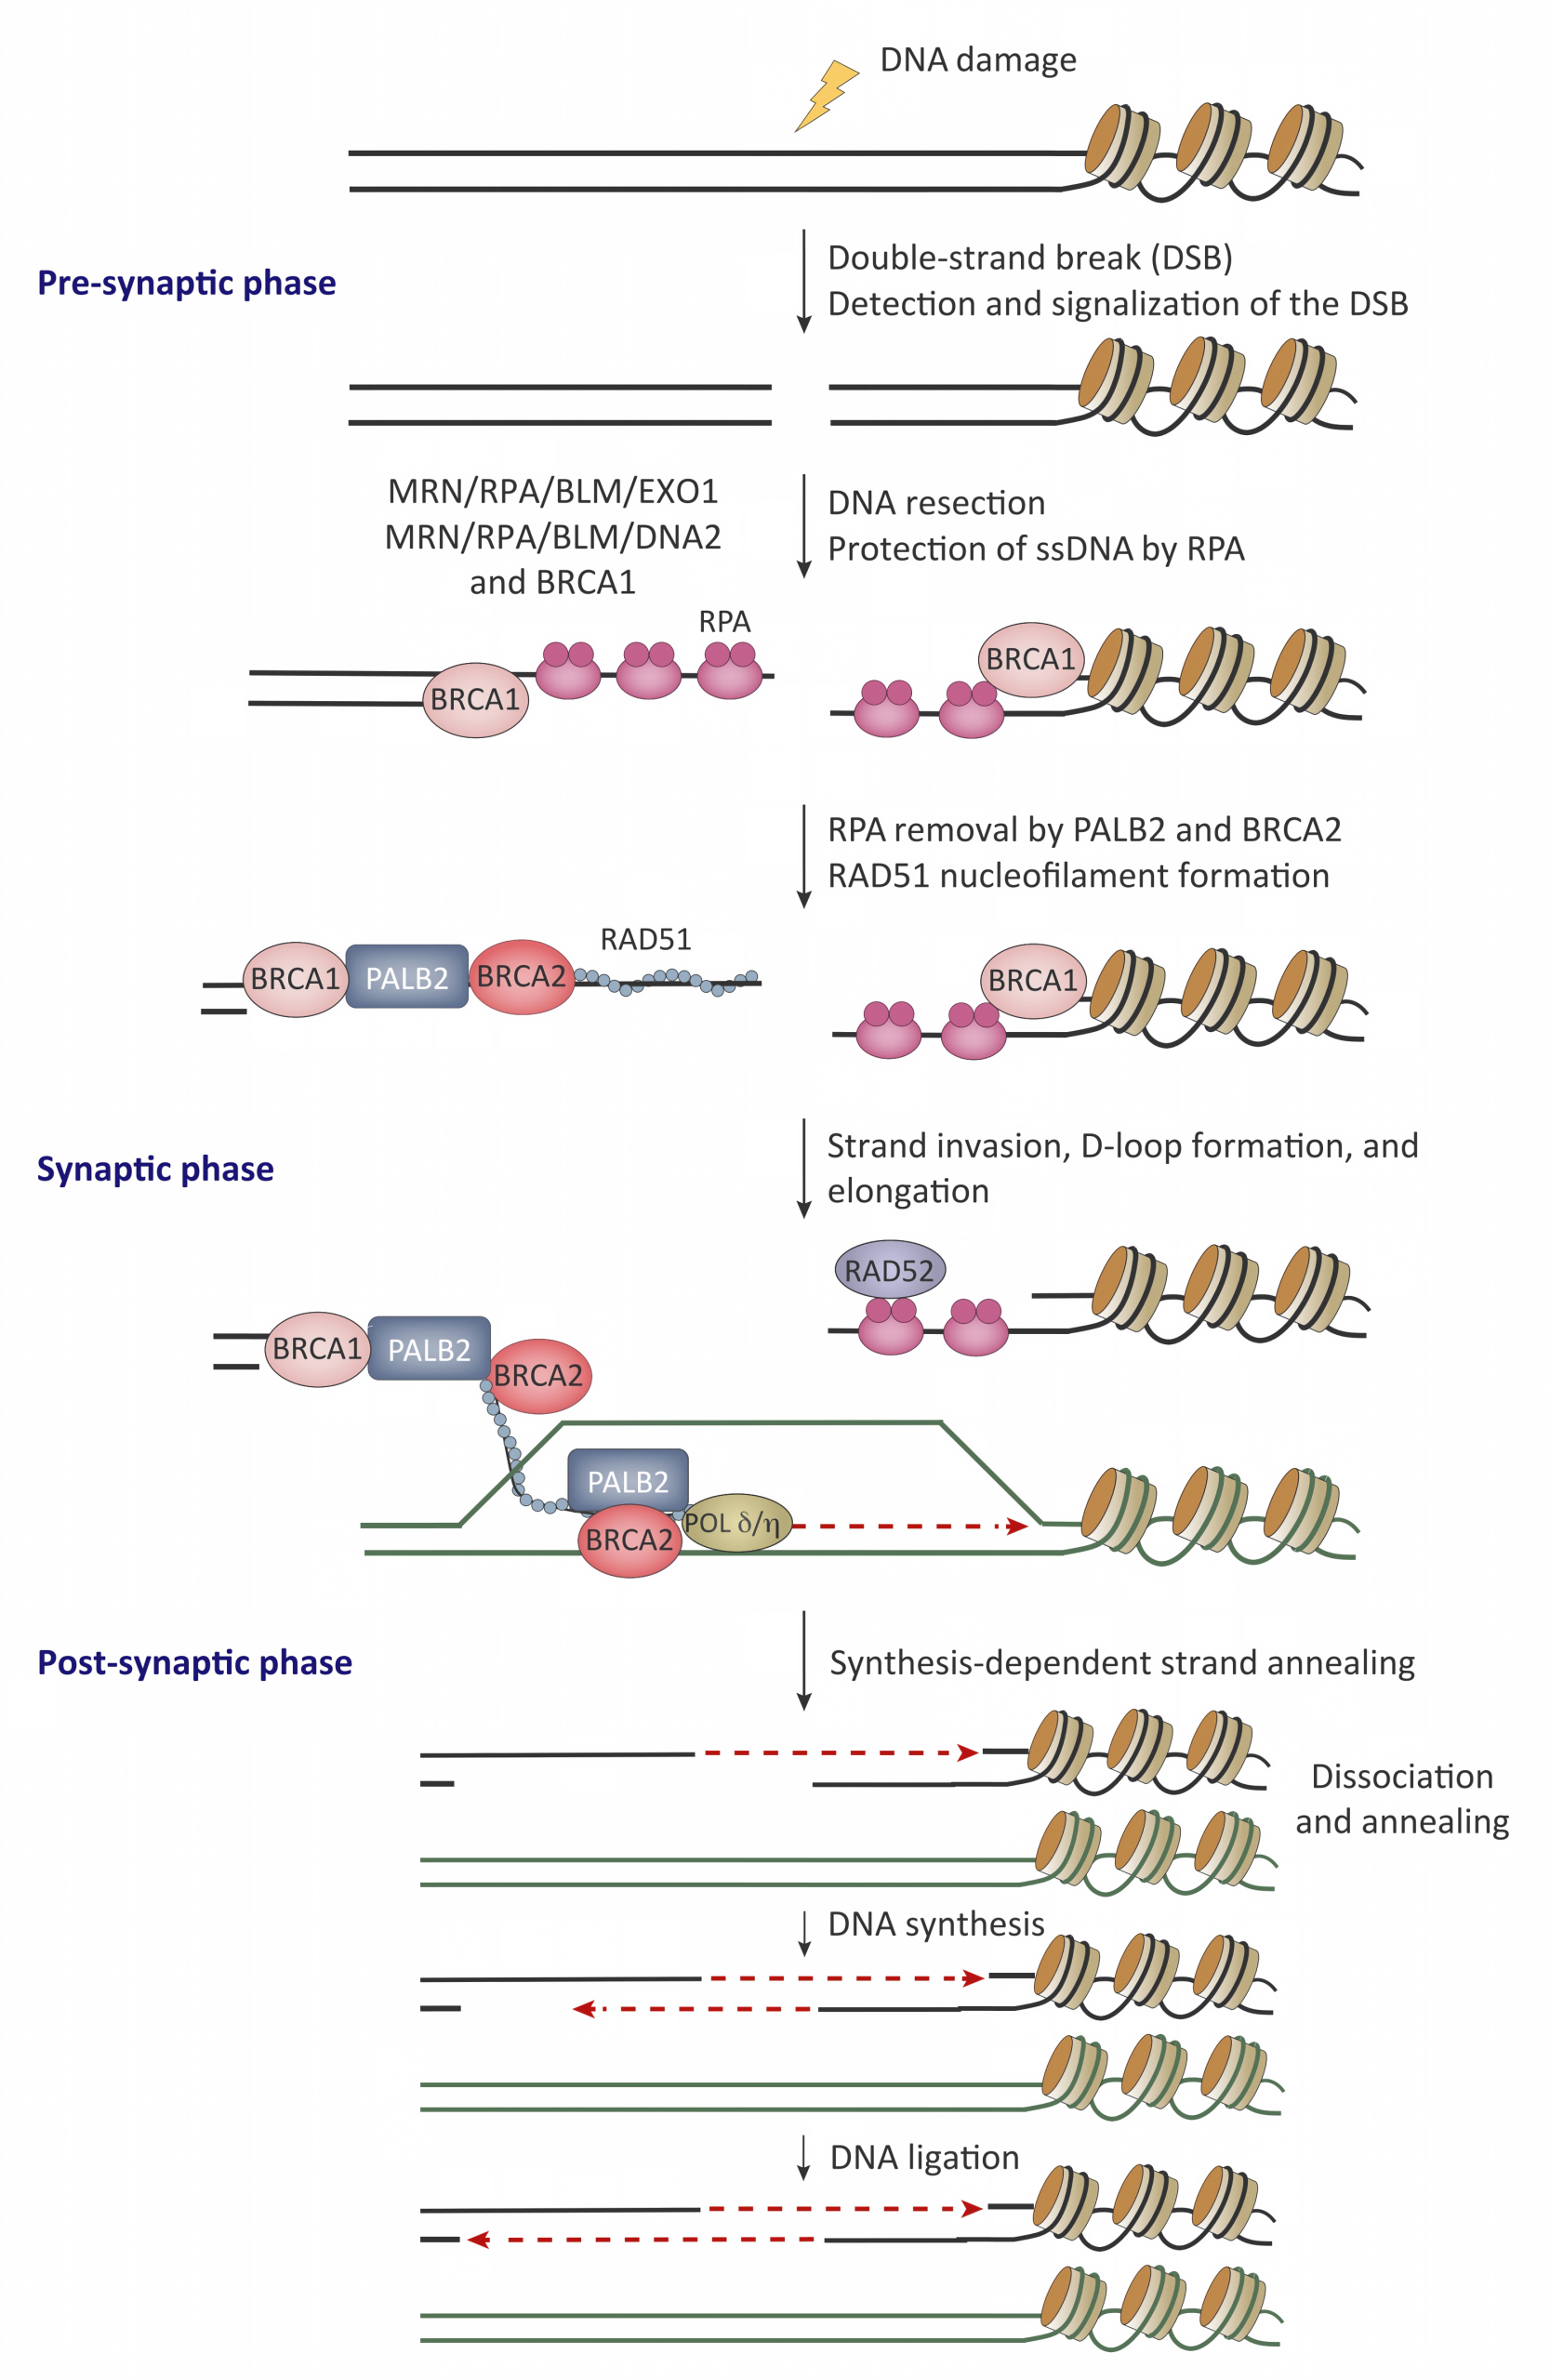
图1. PALB2在同源重组修复中的作用示意图[4]。
DNA双链断裂修复路径的选择受末端切除调控。BRCA1–BARD1促进末端切除并有利于同源重组启动;53BP1相关通路则限制末端切除,参与维持断端保护及修复路径平衡。末端切除之后,PALB2进一步衔接BRCA2–RAD51装载;因此,PALB2缺失会影响损伤位点募集及后续重组执行[7][8]。
PALB2蛋白结构域与功能调控
PALB2蛋白的功能依赖多个结构域协同。N端coiled-coil结构域参与BRCA1结合及PALB2自身相互作用;C端WD40结构域参与BRCA2结合和复合体组装,中央的ChAM及DNA结合区域则有助于PALB2接近染色质、DNA和复制叉。Nepomuceno等2021年的综述汇总了136个临床意义未明变异(VUS)的功能评估,其中15个变异在多项实验中一致表现为功能丧失,且均位于coiled-coil或WD40结构域[5]。
PALB2的活性受细胞周期和染色质状态调控。在S期和G2期,CDK和ATR相关磷酸化有利于PALB2参与同源重组;在不适合进行同源重组的细胞周期阶段,泛素化降解可限制PALB2积累。PALB2还可通过ChAM和MRG15等因素参与活跃染色质、复制压力及转录相关损伤应答,并与KEAP1/NRF2相关氧化应激调控发生联系[4][6]。
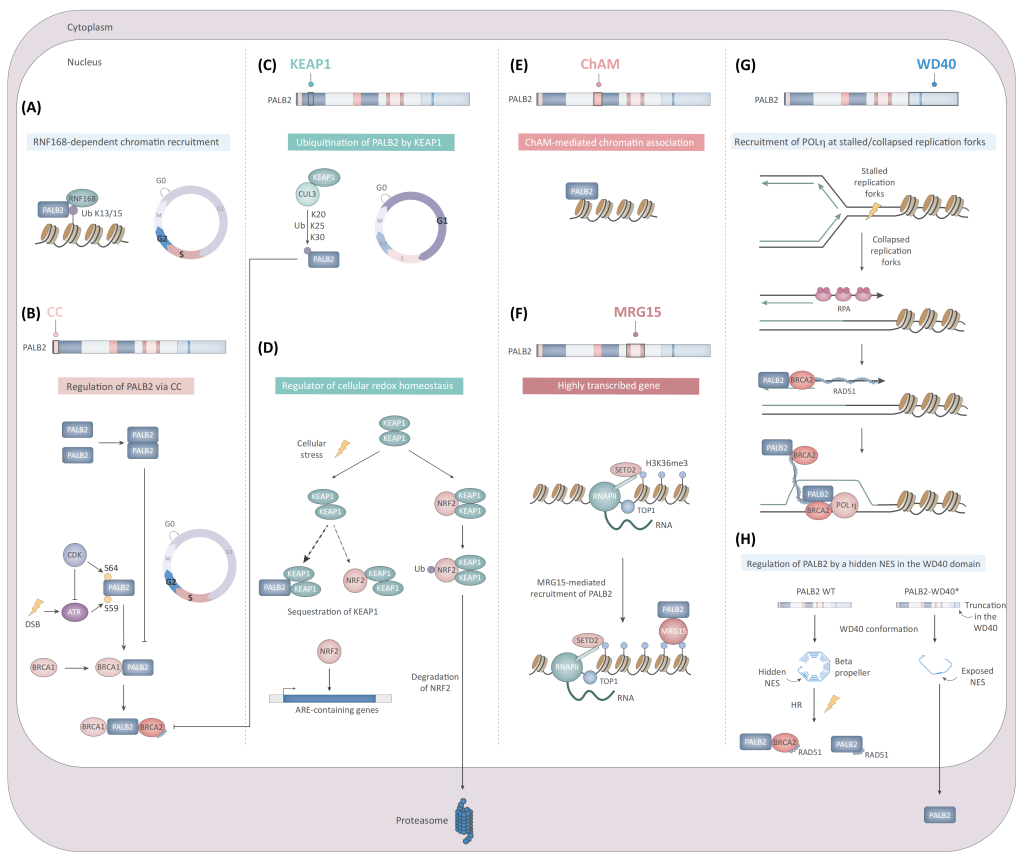
图2. PALB2功能结构域及其调控机制[4]。
PALB2蛋白的损伤位点募集:BRCA1依赖与替代机制
PALB2的募集通常依赖BRCA1;Foo和Xia总结的研究还显示,在特定背景下,PALB2可通过BRCA1非依赖机制募集至DNA损伤位点,包括直接结合DNA或RPA、识别RNF168修饰的染色质,以及借助MRG15等染色质因素。BRCA1功能受损且53BP1、RIF1或Shieldin相关断端保护减弱时,末端切除可能部分恢复,PALB2可重新出现在损伤位点;这一补偿限于特定遗传背景,并非普遍的BRCA1非依赖修复路径[6]。
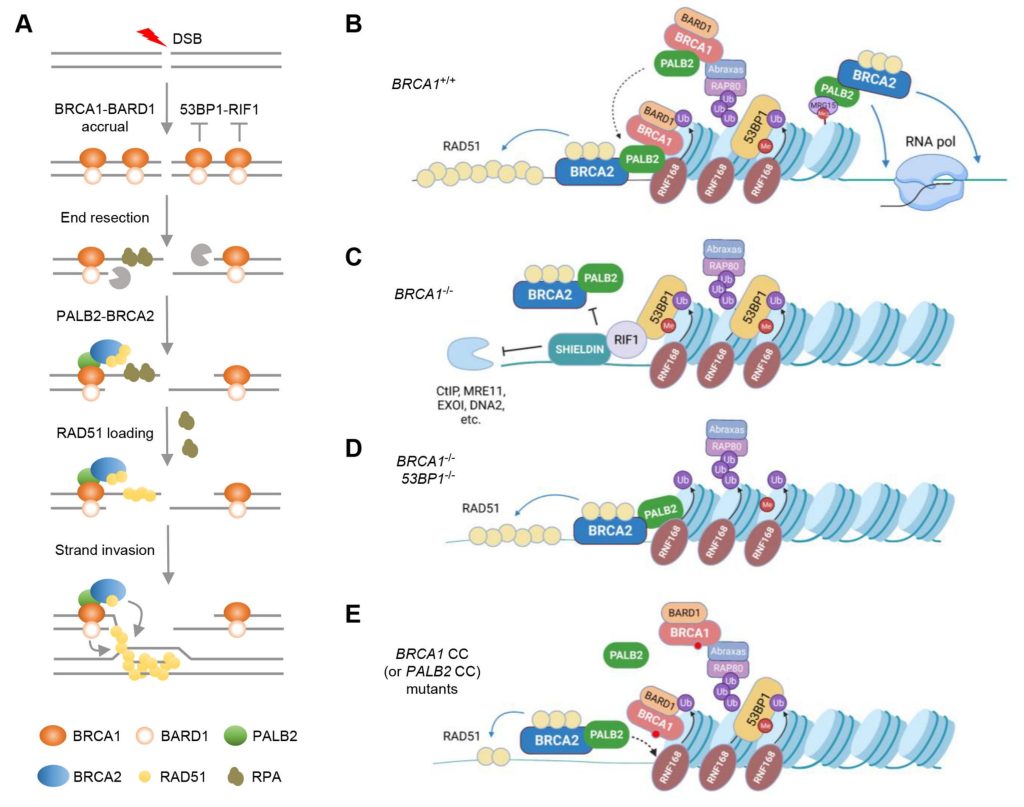
图3. 不同BRCA1和53BP1状态下PALB2–BRCA2–RAD51复合体的募集机制[6]。
PALB2基因检测在临床实践中的应用
《乳腺癌遗传咨询专家共识》建议胚系检测使用正常组织样本,不以肿瘤组织DNA或循环肿瘤DNA替代常规胚系样本;《中国抗癌协会乳腺癌诊治指南与规范(2026年版)》将PALB2列入乳腺癌胚系易感及DNA损伤修复通路相关基因,并区分肿瘤组织DNA检测与血液胚系DNA检测。该遗传咨询共识还建议检测覆盖SNV、小片段插入缺失、拷贝数变异及大片段重排;样本可采用外周血、唾液或口腔拭子,已知家系变异可通过Sanger测序验证,大片段重排需采用相应方法。检测报告应注明样本来源、检测范围、覆盖的变异类型和未覆盖区域[9][10]。
检测指征应结合个人病史、肿瘤表型、发病年龄和家族史判断。《中国家族遗传性肿瘤临床诊疗专家共识(2021年版)(1)—家族遗传性乳腺癌》建议将早发、三阴性乳腺癌及乳腺癌家族史纳入PALB2检测评估;《乳腺癌遗传咨询专家共识》还建议将双侧或男性乳腺癌、多原发肿瘤及相关肿瘤家族聚集纳入遗传风险评估,并据此选择多基因Panel。ACMG于2021年发表的PALB2临床实践资源指出,PALB2通常纳入乳腺癌、卵巢癌或胰腺癌的胚系遗传风险评估Panel。Turnbull等代表ESMO精准肿瘤学工作组于2025年建议将PALB2列入乳腺癌胚系多基因Panel的核心高或中等影响基因,并报告其与乳腺癌风险关联OR为4.30(95%CI:3.68~5.03)[9][11][12][13]。
胚系变异应结合分类结果、个人史和家族史解释。Pathogenic或Likely pathogenic变异可用于遗传性肿瘤易感评估,并支持家系验证;临床意义未明变异(VUS)不能单独用于诊断或临床决策,应结合家系资料、数据库更新和功能证据定期复核。《乳腺癌遗传咨询专家共识》建议定期复核VUS;ACMG于2021年发表的PALB2临床实践资源亦指出,VUS不应用于临床决策。PALB2蛋白结构域功能研究可为错义变异判读提供辅助证据,但不能替代综合变异分类。阴性结果表示本次检测范围内未发现可解释的Pathogenic或Likely pathogenic变异,但不能排除家族性遗传风险;若家族聚集明显或检测范围有限,应核查对拷贝数变异和大片段重排的覆盖[5][9][12]。
先证者检出PALB2 Pathogenic或Likely pathogenic胚系变异后,可针对该家系变异开展一级亲属检测,并结合亲属的个人史和家族史解释结果;亲属未检出已知家系变异,表示未发现该变异,是否需要其他检测仍应依据其自身检测指征评估[9][12]。
总结
PALB2蛋白最初因与BRCA2相互作用而被鉴定;后续研究确立了PALB2基因与遗传性乳腺癌易感的关联,并逐步阐明PALB2蛋白在同源重组修复中的作用,以及其结构域功能、损伤位点募集和细胞周期调控机制。临床检测以PALB2胚系变异的识别、分类与解读为重点,结合个人及家族史评估遗传风险;发现家系致病变异后,可开展亲属检测,并将胚系检测结果与肿瘤组织中的体细胞变异区分。
参考文献:
[1] Xia B, et al. Control of BRCA2 cellular and clinical functions by a nuclear partner, PALB2. Molecular Cell, 2006, 22(6):719–729.
[2] Rahman N, et al. PALB2, which encodes a BRCA2-interacting protein, is a breast cancer susceptibility gene. Nature Genetics, 2007, 39(2):165–167.
[3] Tischkowitz M, Xia B. PALB2/FANCN: recombining cancer and Fanconi anemia. Cancer Research, 2010, 70(19):7353–7359.
[4] Ducy M, et al. The Tumor Suppressor PALB2: Inside Out. Trends in Biochemical Sciences, 2019, 44(3):226–240.
[5] Nepomuceno TC, et al. PALB2 Variants: Protein Domains and Cancer Susceptibility. Trends in Cancer, 2021, 7(3):188–197.
[6] Foo TK, Xia B. BRCA1-Dependent and Independent Recruitment of PALB2-BRCA2-RAD51 in the DNA Damage Response and Cancer. Cancer Research, 2022, 82(18):3191–3197.
[7] Tarsounas M, Sung P. The antitumorigenic roles of BRCA1-BARD1 in DNA repair and replication. Nature Reviews Molecular Cell Biology, 2020, 21(5):284–299.
[8] Swift ML, et al. Mechanisms and disease relevance of DNA break repair pathway choice. Nature Reviews Molecular Cell Biology, 2026, online first.
[9] 中国抗癌协会乳腺癌整合防筛专业委员会. 乳腺癌遗传咨询专家共识. 中华乳腺病杂志(电子版), 2026, 20(4):197–206.
[10] 中国抗癌协会乳腺癌专业委员会,中华医学会肿瘤学分会乳腺肿瘤学组. 中国抗癌协会乳腺癌诊治指南与规范(2026年版). 中国癌症杂志, 2025, 35(12):1157–1255.
[11] 中国抗癌协会家族遗传性肿瘤专业委员会. 中国家族遗传性肿瘤临床诊疗专家共识(2021年版)(1)—家族遗传性乳腺癌. 中国肿瘤临床, 2021, 48(23):1189–1195.
[12] Tischkowitz M, et al. Management of individuals with germline variants in PALB2: a clinical practice resource of the American College of Medical Genetics and Genomics (ACMG). Genetics in Medicine, 2021, 23(8):1416–1423.
[13] Turnbull C, et al. Breast cancer germline multigene panel testing in mainstream oncology based on clinical-public health utility: ESMO Precision Oncology Working Group recommendations. Annals of Oncology, 2025, 36(8):853–865.
TargetCap® Core Exome Panel v3.0
TargetCap@ Core Exome Panel v3.0基于伯科高品质DNA探针合成技术开发,全流程国产制造,由~40万条探针组成,以GRCh38/hg38人类参考基因组设计,参考Refseq、CCDS、ClinVar等数据库,覆盖19,524个基因,目标区域为33.9Mb。
捕获性能比较
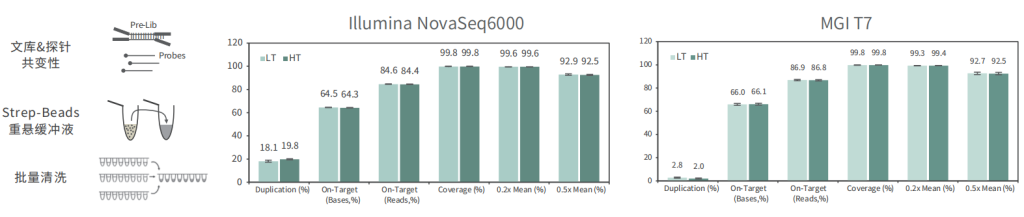
伯科全外芯片v3.0性能优异与国外友商同类型产品v2相当,中靶率、覆盖率、覆盖均一性等参数均达到国际领先水平。
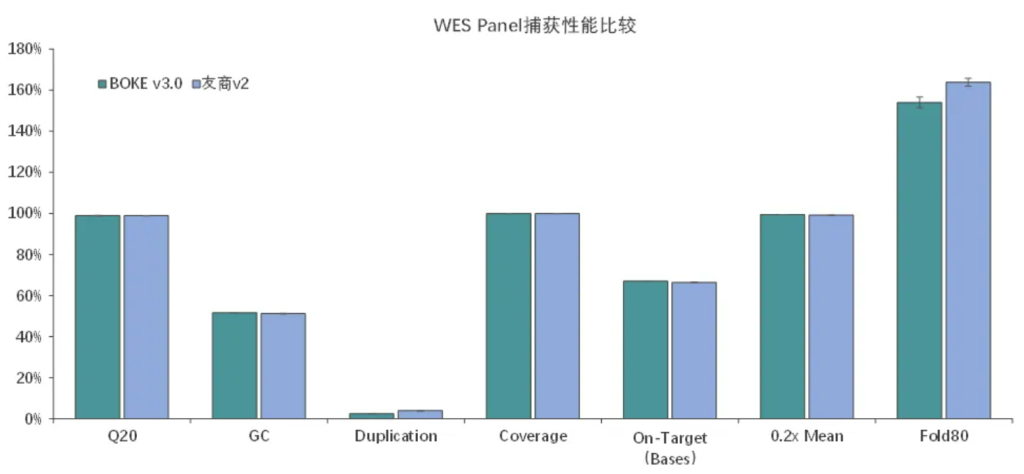
适配高通量流程平台
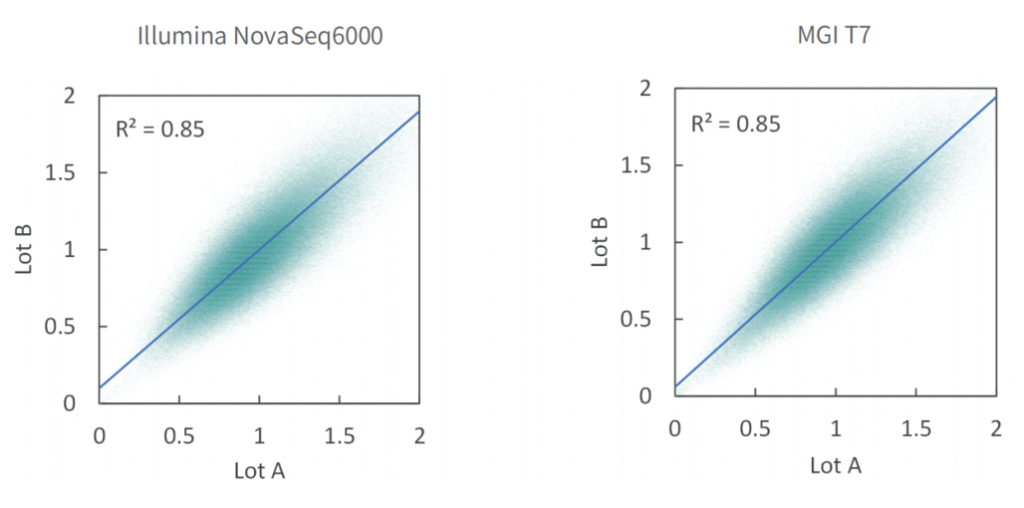
批次稳定
使用不同批次TargetCap® Core Exome Panel v3.0芯片对NA12878 gDNA进行捕获测序,结果显示,不同批次芯片在不同测序平台上均显示出优异的稳定性,不同位点的相对深度相关性高,批次稳定。
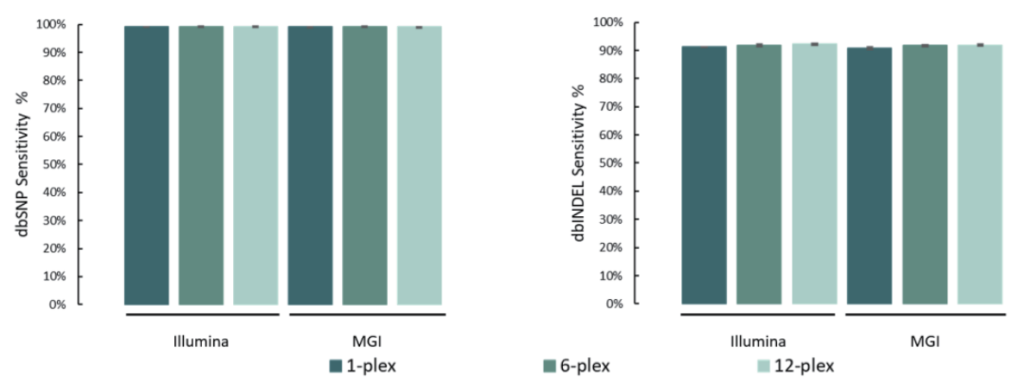
变异检测准确
单核苷酸变异(SNV)和插入缺失 (INDEL)是基因组变异的常见形式,也是引起人类疾病的重要原因。
选取NA12878标准品,与预期SNV和INDEL变异进行比较。结果表明,在MGI与Illumina测序平台,SNP灵敏度为99.1%,INDEL灵敏度为91.6%。
添加线粒体模块临床样本表现
20例全血样本(S1#-S20#),采用1-4 Plex方式使用TargetCap® Core Exome Panel v3.0添加线粒体模块进行过夜杂交捕获;其中,S1#-S10#在Illumina NovaSeq X Plus平台测序, S11#-S20#在MGI MGISEQ-T7平台测序,均采用150PE模式测序。得到测序数据后,抽取8Gb数据进行生信分析。
两种测序平台的数据表现相近,平均深度分别为111x/115x (Illumina/MGI),中靶率优异均> 85%,覆盖均一性极佳(0.2X_MD≥99.3%);仅使用8Gb数据,高达98.5%的捕获区域达到了30X以上,99.5%的捕获区域达到20X以上,为临床样本检测提供了可靠的捕获数据。
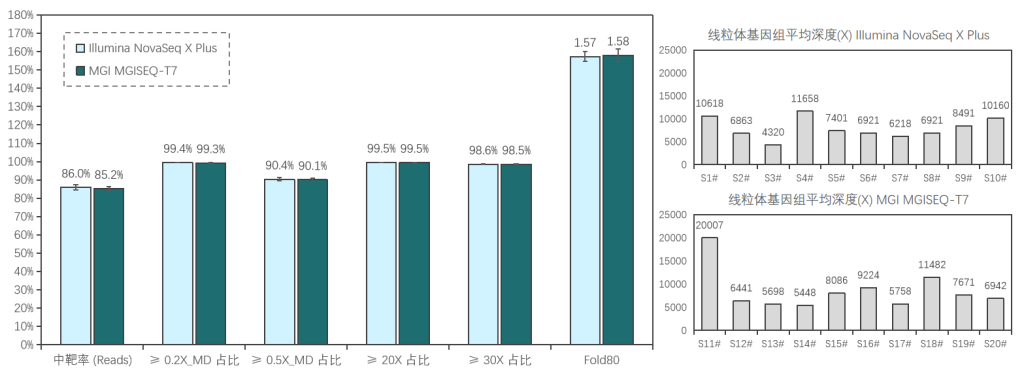
≥0.2X/0.5X_MD: Mean Depth,覆盖深度≥平均深度的0.2/0.5倍深度的区域占总区域的比例,用于表征覆盖均一性性能,越接近100%越好。
TargetCap® Core Exome Panel v7.0
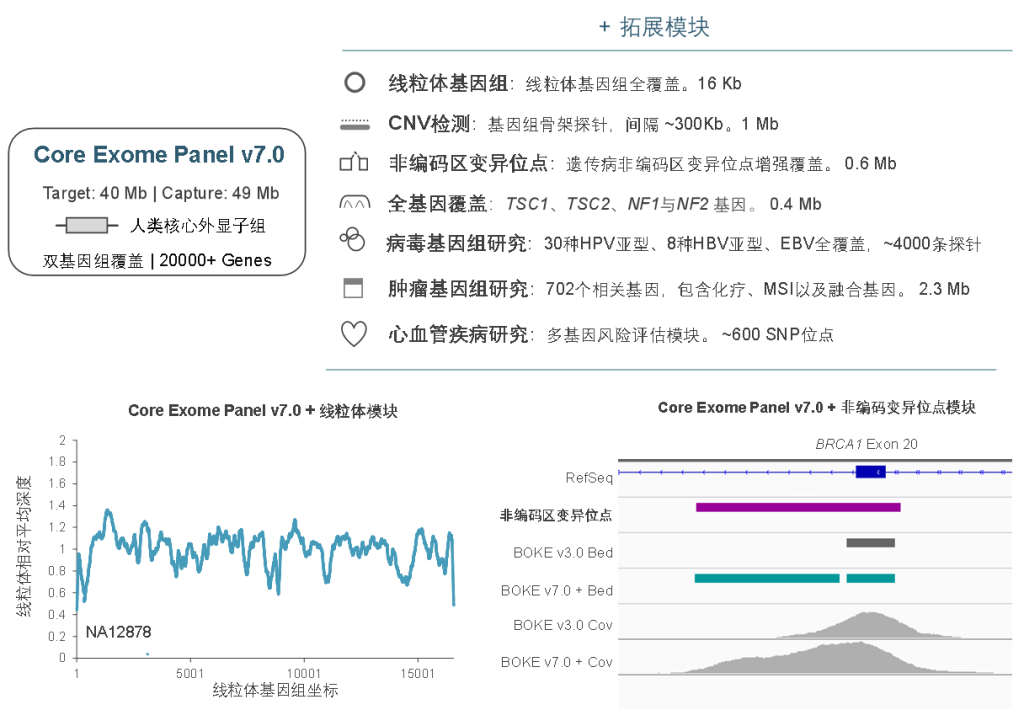
TargetCap® Core Exome Panel v7.0(下文简称BOKE v7.0),该WES Panel增强了基因组hg19传统研究区域的覆盖,兼顾 hg19 & hg38 双版本基因组,可以更好的保证临床科研与转化的延续性。目标区域和捕获区域大小分别为40Mb和49Mb,对 hg19 传统研究区域覆盖提升至99.7%(友商I-v1),hg38传统研究区域覆盖相近(友商A-v8)。同时,新添加数百个具有一定功能与表型的基因,总基因数量达到20000+。
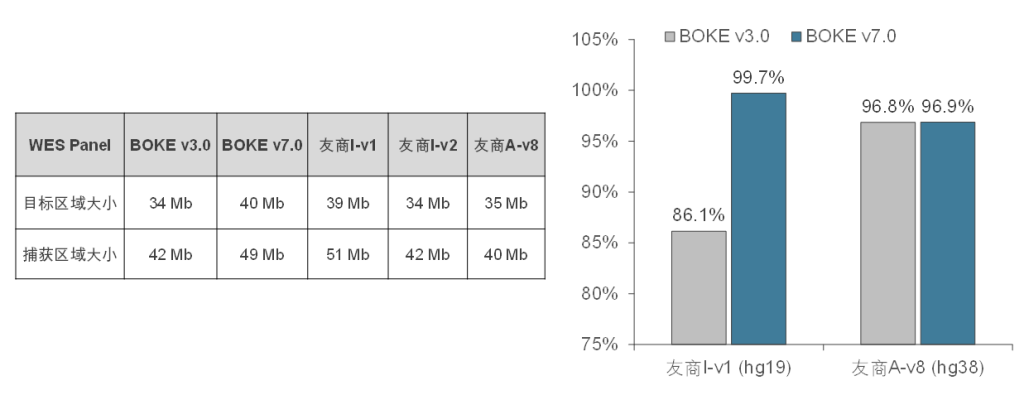
BOKE Core Exome Panel v7.0目标区域大小以及对不同友商产品目标区域的覆盖情况
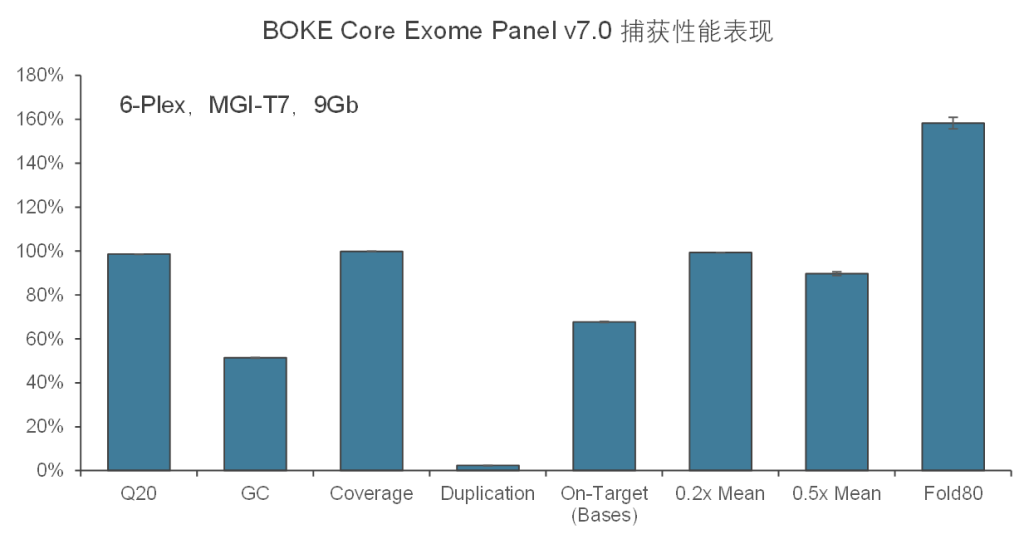
在捕获性能方面,TargetCap® Core Exome Panel v7.0依然表现优异,与TargetCap® Core Exome Panel v3.0表现相近。在测序9Gb条件下,平均深度达到110x左右,20x和30x以上区域占比分别为99.5%和98.5%,Fold 80为1.5-1.6之间,与国际领先产品数据表现相当。
同时,TargetCap® Core Exome Panel v7.0也可灵活的与拓展模块组合使用,满足不同场景的临床研究的需求及转化应用,包括线粒体、遗传病非编码区变异位点、单基因全覆盖、病毒基因组、肿瘤全景变异检测、重大疾病多基因风险评估模块等。此外,伯科公司自研自造的寡核苷酸合成平台可以快速响应个性化定制的需求,为人类基因组分子遗传学的研究与转化,提供更加全面高效的解决方案。