基因FGFR3:受体信号调控与骨骼发育相关机制
- boke
- 2026-11-10
- 9:47 上午
FGFR3基因
FGFR3(fibroblast growth factor receptor 3)位于4号染色体短臂4p16.3,基因组跨度约15.6 kb,含19个外显子。该基因编码成纤维细胞生长因子受体3,属于成纤维细胞生长因子受体家族;其蛋白由细胞外免疫球蛋白样结构域、跨膜区和胞质酪氨酸激酶结构域组成,参与成纤维细胞生长因子介导的信号传递、骨骼发育和骨组织维持。FGFR3基因变异与颅缝早闭及多种骨骼发育不良相关。Pathogenic(致病)位点为37个,Likely pathogenic(可能致病)位点为10个;Pathogenic/Likely pathogenic(致病/可能致病)合并分类另有12个位点。
FGFR3基因的发现史
FGFR3与软骨发育不全的关联发现源于对该病遗传学基础的研究。1994年,Shiang等在软骨发育不全患者中发现FGFR3跨膜区p.Gly380Arg变异,将FGFR3确定为该病的致病基因。这项发现把骨骼发育异常与一种跨膜受体酪氨酸激酶联系起来,为研究FGFR3在骨骼生长中的作用提供了直接的遗传学依据[2]。
同年,Rousseau等在4p16.3区域的遗传定位基础上开展候选基因研究,在散发病例和家系病例中发现FGFR3跨膜区p.Gly380Arg变异,独立验证了FGFR3与软骨发育不全的关联。两项研究共同确立了这一关键变异的致病意义,推动后续研究从基因定位和变异识别,进一步转向FGFR3受体活化、下游信号及软骨细胞生长调控机制[1]。
FGFR3蛋白的结构、配体激活与下游信号
FGFR3是单次跨膜受体酪氨酸激酶,细胞外部分由三个免疫球蛋白样结构域组成,跨膜区连接胞内酪氨酸激酶结构域。FGF配体与受体及细胞表面辅助分子结合后,可促进受体二聚化和构象变化,使胞内激酶结构域相互作用并发生磷酸化。活化后的FGFR3通过FRS2等接头蛋白募集GRB2、SOS等信号分子,激活RAS-RAF-MEK-ERK通路,并可经不同分支调节PI3K-AKT、PLCγ及STAT相关信号,影响细胞增殖、分化和存活;信号强度、持续时间和细胞背景共同影响最终的生物学结果[3][4][10]。
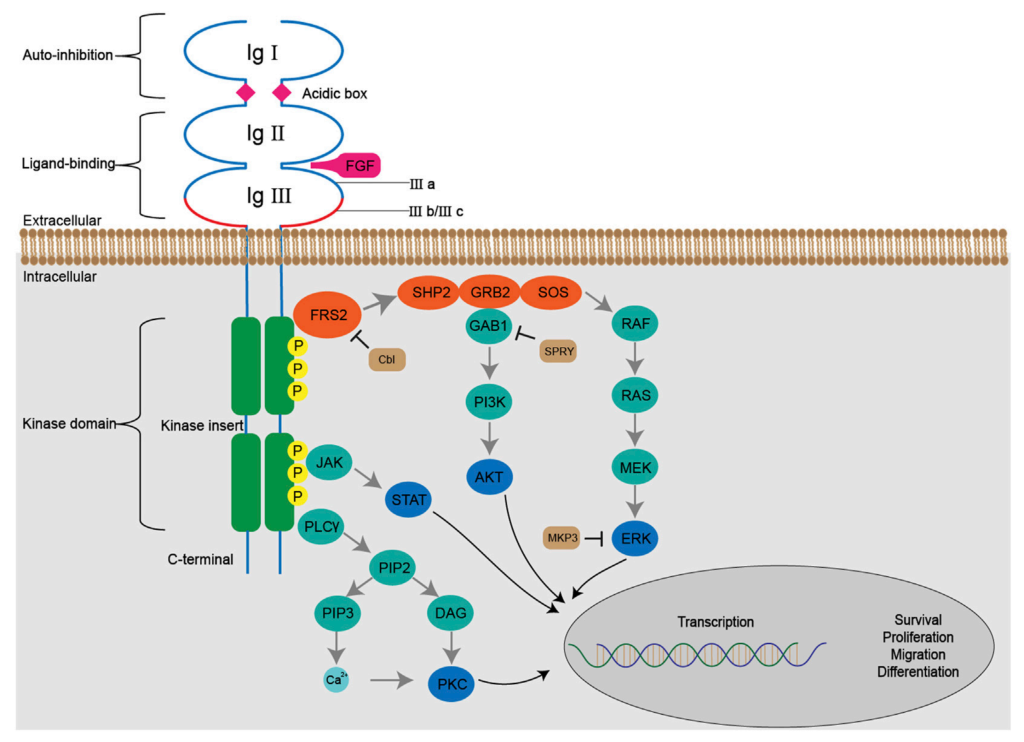
图1. FGF–FGFR信号通路示意图。FGF与受体结合后促进激酶结构域磷酸化,并通过接头蛋白连接RAS-MAPK-ERK、PI3K-AKT、JAK-STAT和PLCγ-PKC等下游通路;Cbl、SPRY和MKP3等参与信号负向调控[10]。
FGFR3基因变异与骨骼发育及肿瘤相关机制
在生长板中,FGFR3参与调节软骨细胞增殖、分化及软骨内成骨。部分功能获得性胚系变异可增强FGFR3受体活性,使其对软骨细胞生长的抑制作用持续增强。FGFR3异常活化可使RAS-RAF-MEK-ERK信号持续增强,并影响细胞周期调控、细胞外基质稳态和软骨细胞分化,共同扰乱生长板功能,影响长骨生长,导致软骨发育不全等骨骼发育不良。不同变异所处结构区域及其对受体活性的影响不同,因此可产生不同的功能后果。FGFR3信号的作用还具有细胞背景依赖性:在软骨细胞中,异常活化可表现为生长抑制和分化紊乱;在部分肿瘤细胞中,则可支持细胞增殖和存活。在肿瘤中,激活性点突变可促进受体异常二聚化或激酶持续活化,部分FGFR3融合可借助融合伙伴促进受体聚集,扩增则可能增加受体表达,进而增强下游信号[3][4][5][6]。
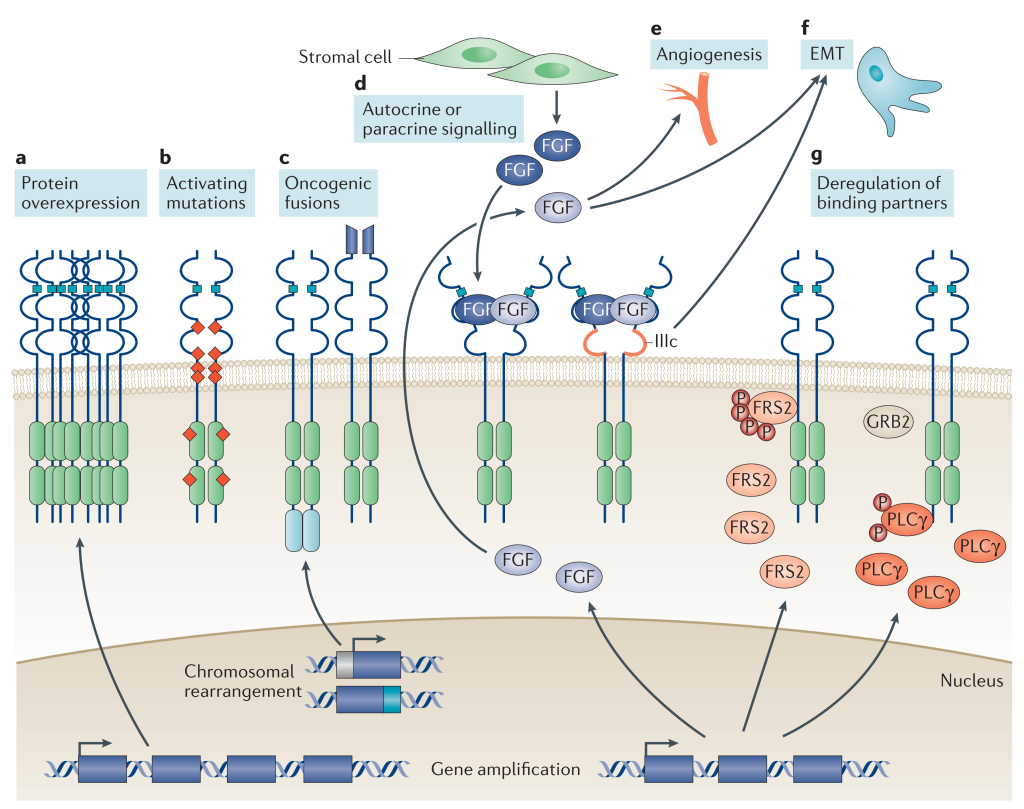
图2. FGFR异常活化的主要机制。基因扩增可增加受体表达;激活性变异可促进配体非依赖性二聚化或激酶持续活化;基因融合可通过促进受体二聚化或改变表达调控等方式增强信号[3]。
FGFR3基因检测的临床实践应用
FGFR3基因检测的临床价值主要在于识别与表型相符的胚系致病或可能致病变异,明确骨骼发育不良的遗传学病因,并为家系风险评估提供依据。对于具有相关临床表现或家族史的个体,检出与表型相符的FGFR3致病或可能致病变异,可以支持或确认相关遗传诊断;未检出变异则不能排除检测范围以外的FGFR3变异、其他相关基因或尚未明确的遗传机制[7]。
FGFR3胚系变异的解释需要结合变异本身、受检者表型、家系资料和既往证据。临床报告应区分致病或可能致病变异、临床意义未明变异和阴性结果;临床意义未明变异不能单独用于确定遗传病因或推断家系风险。先证者检出致病或可能致病变异后,父母验证有助于判断变异来源,其他家系成员的检测则应围绕已确认的家族变异开展。对于有生育需求的家庭,检测结果还可用于遗传咨询和生育风险评估,具体判断应以家族变异、父母检测结果和家系资料为基础,不能仅根据疾病名称或临床表现推定胎儿及其他亲属的携带状态[7]。
在软骨发育不全中,FGFR3胚系变异检测还可为针对异常信号的治疗评估提供遗传学依据。治疗适用性需结合临床表现、生长发育状态及相应批准条件判断,不能仅凭检出FGFR3变异决定。相关通路干预可通过调节FGFR3下游信号发挥作用,并不均为直接抑制FGFR3受体[4][7]。
与上述胚系变异相关应用不同,尿路上皮癌中的FGFR3检测主要用于识别肿瘤体细胞改变。激活性突变和融合等结果可为肿瘤分子分层及FGFR靶向治疗人群筛选提供依据,但其用药价值取决于具体变异类型、疾病阶段和药物适应证,不能将所有FGFR3改变作相同解释。尿液DNA中的FGFR3突变检测还被用于辅助诊断和复发监测,其应用价值需要结合具体检测方案及验证证据评价[8][9][11]。
在部分胶质瘤中,FGFR3-TACC3融合属于肿瘤体细胞改变,可为研究性靶向治疗提供线索。RAGNAR研究探索了厄达替尼在携带FGFR改变的实体瘤中的应用;对于FGFR3-TACC3融合胶质瘤,应依据相应癌种及变异亚组结果评价疗效,相关治疗仍属于研究性应用[5][12]。
FGFR3检测结果的解释应明确样本来源、变异类型及临床场景。肿瘤样本中检出的FGFR3改变不能直接作为胚系变异或家族遗传风险的依据,应结合个人及家族史进行判断。
总结
FGFR3研究由软骨发育不全相关变异的发现起步,逐步明确了该基因编码的受体酪氨酸激酶在骨骼发育、软骨细胞生长和细胞信号调控中的作用。FGFR3胚系变异主要用于骨骼发育不良的分子诊断、家系验证和遗传风险评估;肿瘤中的FGFR3突变、融合和扩增属于体细胞分子改变,需要结合肿瘤类型、样本来源和变异证据进行解释。
参考文献:
[1] Rousseau F, Bonaventure J, Legeai-Mallet L, et al. Mutations in the gene encoding fibroblast growth factor receptor-3 in achondroplasia. Nature, 1994, 371(6494):252–254.
[2] Shiang R, Thompson LM, Zhu YZ, et al. Mutations in the transmembrane domain of FGFR-3 cause the most common genetic form of dwarfism, achondroplasia. Cell, 1994, 78(2):335–342.
[3] Babina IS, Turner NC. Advances and challenges in targeting FGFR signalling in cancer. Nature Reviews Cancer, 2017, 17:318–332.
[4] Foldynová-Trantírková S, Wilcox WR, Krejci P. Sixteen years and counting: the current understanding of fibroblast growth factor receptor 3 (FGFR3) signaling in skeletal dysplasias. Human Mutation, 2012, 33(1):29–41.
[5] Krook MA, et al. Fibroblast growth factor receptors in cancer: genetic alterations, diagnostics, therapeutic targets and mechanisms of resistance. British Journal of Cancer, 2021, 124:880–895.
[6] Knowles MA. FGFR3—A Central Player in Bladder Cancer Pathogenesis? Bladder Cancer, 2020, 6(4):403–423.
[7] 中国医师协会医学遗传医师分会,中华医学会儿科学分会内分泌遗传代谢学组,等. 软骨发育不全诊断及治疗专家共识. 中华儿科杂志, 2021, 59(7):545–550.
[8] 中国肿瘤医院泌尿肿瘤协作组. 膀胱癌早诊早治专家共识(2024年版). 中国癌症杂志, 2024, 34(6):607–618.
[9] Xu CW, et al. Expert Consensus on the Diagnosis and Treatment of FGFR Gene-Altered Solid Tumors. Global Medical Genetics, 2024, 11(4):330–343.
[10] Zheng J, et al. Signaling Pathway and Small-Molecule Drug Discovery of FGFR: A Comprehensive Review. Frontiers in Chemistry, 2022, 10:860985.
[11] 中国医师协会泌尿外科医师分会肿瘤专业委员会,中国医师协会泌尿外科医师分会上尿路尿路上皮癌(CUDA-UTUC)协作组. 上尿路尿路上皮癌诊断与治疗中国专家共识. 中华泌尿外科杂志, 2018, 39(7):485–488.
[12] Carranza O, Pant S, Schuler M, et al. Erdafitinib in Patients With Advanced Solid Tumors With FGFR Alterations (RAGNAR): Results of Tumor-Specific Analyses and Secondary Cohorts. JCO Precision Oncology, 2026, 10:e2501094.
TargetCap® Core Exome Panel v3.0
TargetCap@ Core Exome Panel v3.0基于伯科高品质DNA探针合成技术开发,全流程国产制造,由~40万条探针组成,以GRCh38/hg38人类参考基因组设计,参考Refseq、CCDS、ClinVar等数据库,覆盖19,524个基因,目标区域为33.9Mb。
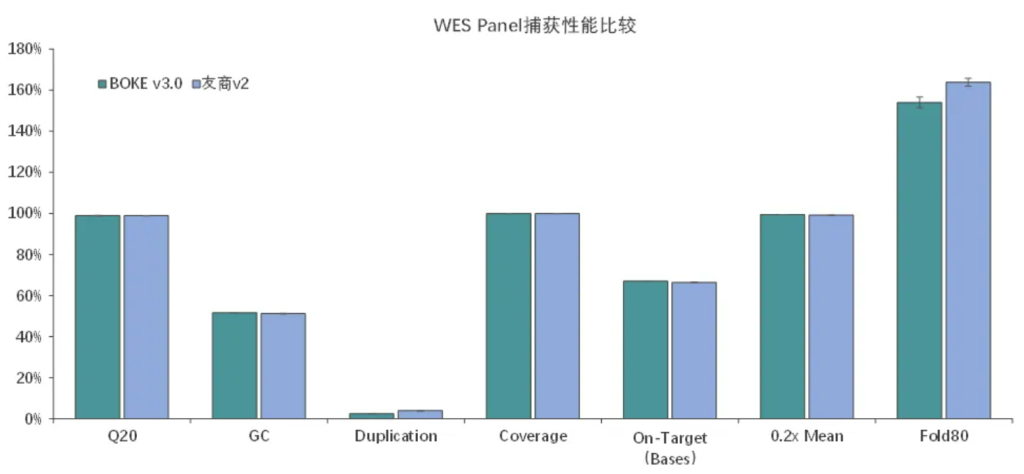
捕获性能比较
伯科全外芯片v3.0性能优异与国外友商同类型产品v2相当,中靶率、覆盖率、覆盖均一性等参数均达到国际领先水平。
适配高通量流程平台
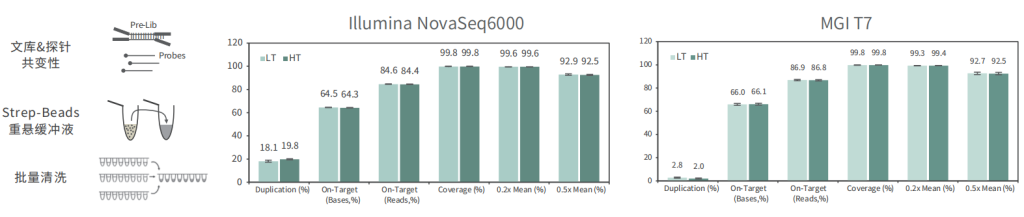
批次稳定
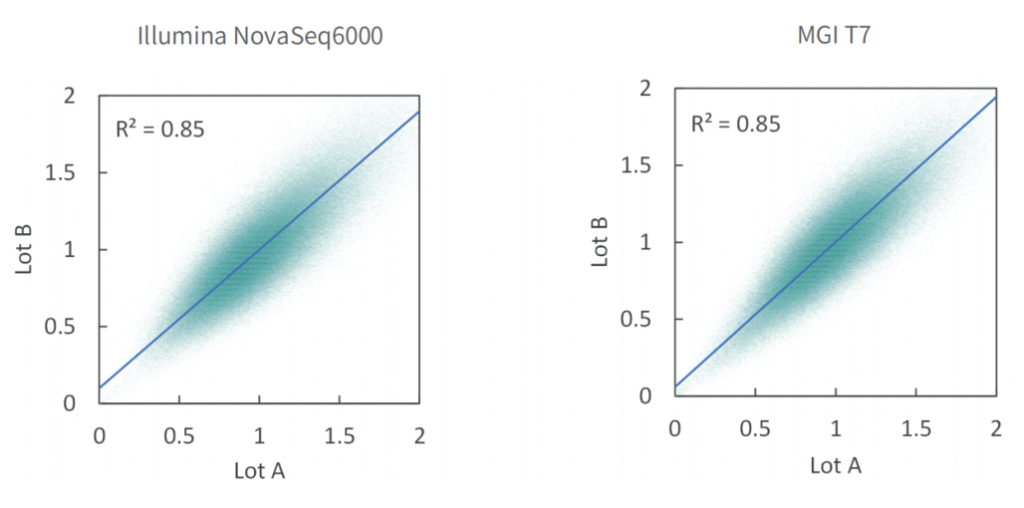
使用不同批次TargetCap® Core Exome Panel v3.0芯片对NA12878 gDNA进行捕获测序,结果显示,不同批次芯片在不同测序平台上均显示出优异的稳定性,不同位点的相对深度相关性高,批次稳定。
变异检测准确
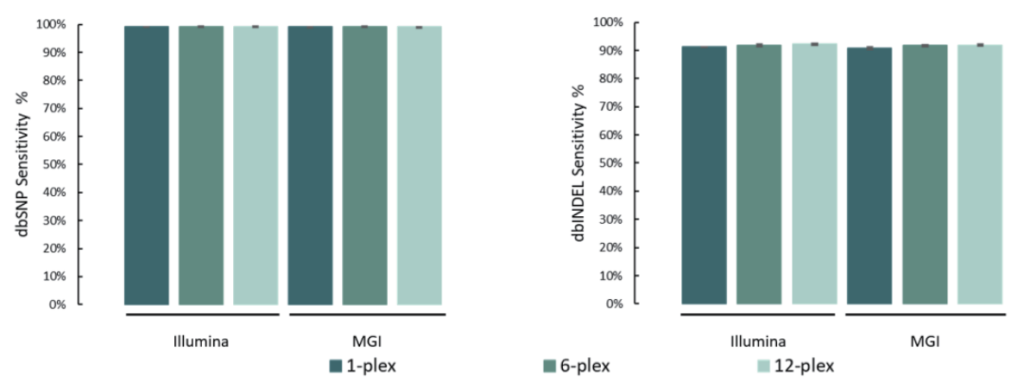
单核苷酸变异(SNV)和插入缺失 (INDEL)是基因组变异的常见形式,也是引起人类疾病的重要原因。
选取NA12878标准品,与预期SNV和INDEL变异进行比较。结果表明,在MGI与Illumina测序平台,SNP灵敏度为99.1%,INDEL灵敏度为91.6%。
添加线粒体模块临床样本表现
20例全血样本(S1#-S20#),采用1-4 Plex方式使用TargetCap® Core Exome Panel v3.0添加线粒体模块进行过夜杂交捕获;其中,S1#-S10#在Illumina NovaSeq X Plus平台测序, S11#-S20#在MGI MGISEQ-T7平台测序,均采用150PE模式测序。得到测序数据后,抽取8Gb数据进行生信分析。
两种测序平台的数据表现相近,平均深度分别为111x/115x (Illumina/MGI),中靶率优异均> 85%,覆盖均一性极佳(0.2X_MD≥99.3%);仅使用8Gb数据,高达98.5%的捕获区域达到了30X以上,99.5%的捕获区域达到20X以上,为临床样本检测提供了可靠的捕获数据。
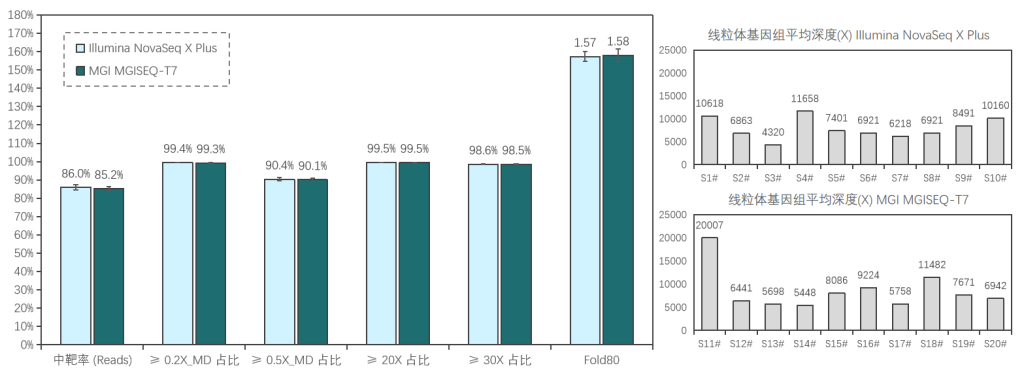
≥0.2X/0.5X_MD: Mean Depth,覆盖深度≥平均深度的0.2/0.5倍深度的区域占总区域的比例,用于表征覆盖均一性性能,越接近100%越好。
TargetCap® Core Exome Panel v7.0
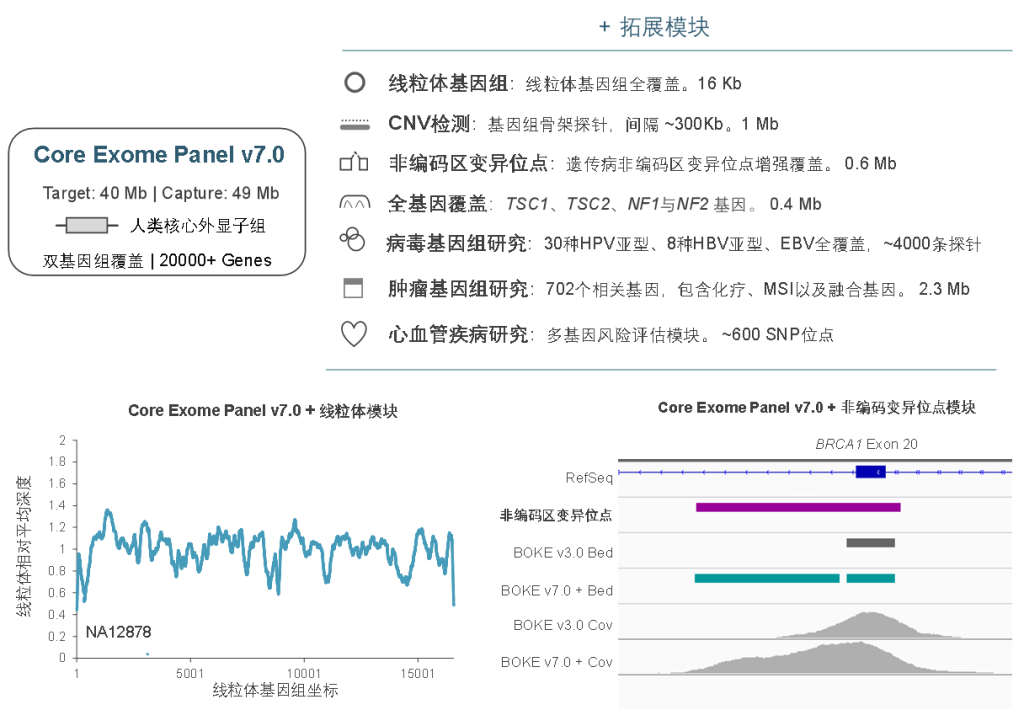
TargetCap® Core Exome Panel v7.0(下文简称BOKE v7.0),该WES Panel增强了基因组hg19传统研究区域的覆盖,兼顾 hg19 & hg38 双版本基因组,可以更好的保证临床科研与转化的延续性。目标区域和捕获区域大小分别为40Mb和49Mb,对 hg19 传统研究区域覆盖提升至99.7%(友商I-v1),hg38传统研究区域覆盖相近(友商A-v8)。同时,新添加数百个具有一定功能与表型的基因,总基因数量达到20000+。
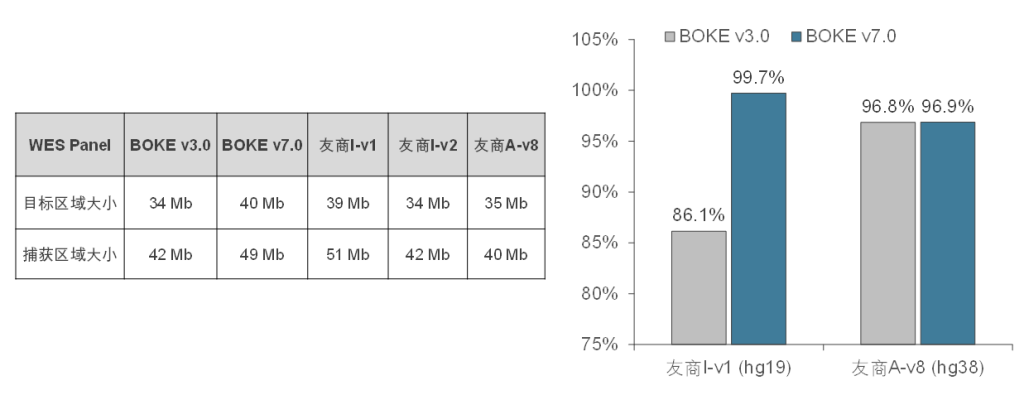
BOKE Core Exome Panel v7.0目标区域大小以及对不同友商产品目标区域的覆盖情况
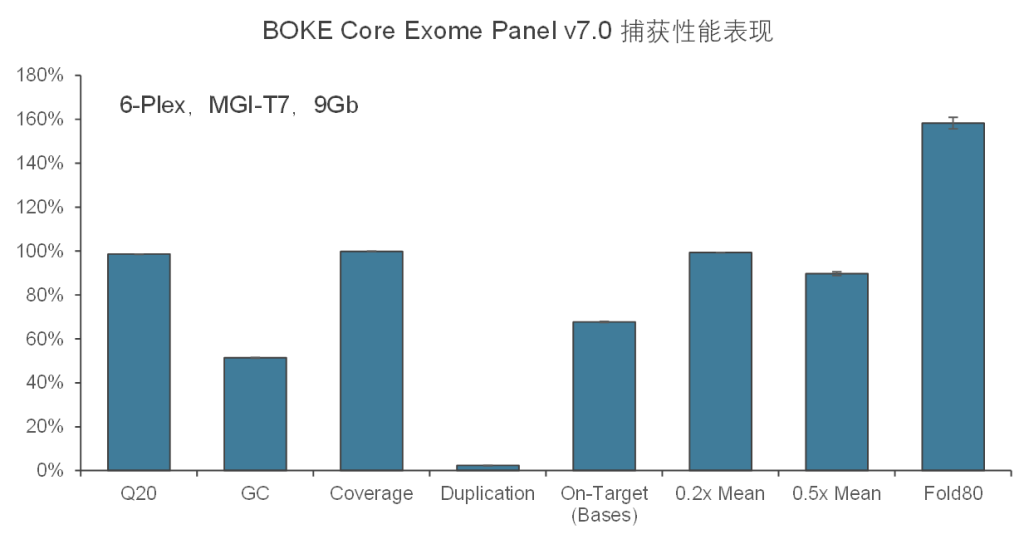
在捕获性能方面,TargetCap® Core Exome Panel v7.0依然表现优异,与TargetCap® Core Exome Panel v3.0表现相近。在测序9Gb条件下,平均深度达到110x左右,20x和30x以上区域占比分别为99.5%和98.5%,Fold 80为1.5-1.6之间,与国际领先产品数据表现相当。
同时,TargetCap® Core Exome Panel v7.0也可灵活的与拓展模块组合使用,满足不同场景的临床研究的需求及转化应用,包括线粒体、遗传病非编码区变异位点、单基因全覆盖、病毒基因组、肿瘤全景变异检测、重大疾病多基因风险评估模块等。此外,伯科公司自研自造的寡核苷酸合成平台可以快速响应个性化定制的需求,为人类基因组分子遗传学的研究与转化,提供更加全面高效的解决方案。