基因VHL:氧感知机制与遗传风险
- boke
- 2026-11-03
- 10:07 上午
VHL基因
VHL(von Hippel-Lindau tumor suppressor)位于3号染色体短臂3p25.3,基因跨度约11.89 kb,含4个外显子。其编码的pVHL是泛素化复合物的组成成分,参与缺氧诱导因子(hypoxia-inducible factor,HIF)的泛素化与降解,并参与纤毛形成、细胞因子信号传导、细胞衰老调节及细胞外基质形成;VHL基因变异与VHL综合征、嗜铬细胞瘤、红细胞增多症、肾细胞癌及小脑血管母细胞瘤相关。Pathogenic(致病)位点为277个,Likely pathogenic(可能致病)位点为91个;Pathogenic/Likely pathogenic(致病/可能致病)合并分类另有68个位点。
VHL基因的发现与抑癌作用
VHL基因的发现始于20世纪80年代末的家系连锁研究。研究者先将遗传位点定位至3号染色体短臂3p25–p26;随后,3名无关患者中发现的相互嵌套胚系缺失进一步缩小了候选区域。1993年,Latif等在这一范围内鉴定出VHL基因。研究还发现,VHL基因序列在哺乳动物、果蝇和海胆等不同物种中均具有相似性,提示该基因可能承担重要的基础细胞功能[1][2]。
对这一新发现的基因进行进一步验证时,Latif等在221名无关VHL患者中发现28人存在该基因区域重排,其中18人为缺失;患者来源细胞系和散发性肾细胞癌细胞系中还检出了VHL基因内的插入、缺失或无义变异,部分变异可随家系传递。随后,杂合性缺失研究发现,VHL相关肿瘤常伴随另一正常等位基因失活;在VHL缺失的肾细胞癌细胞中恢复野生型pVHL,还可抑制体内成瘤。这些证据进一步确立了VHL的肿瘤抑制基因属性[1][2][3]。
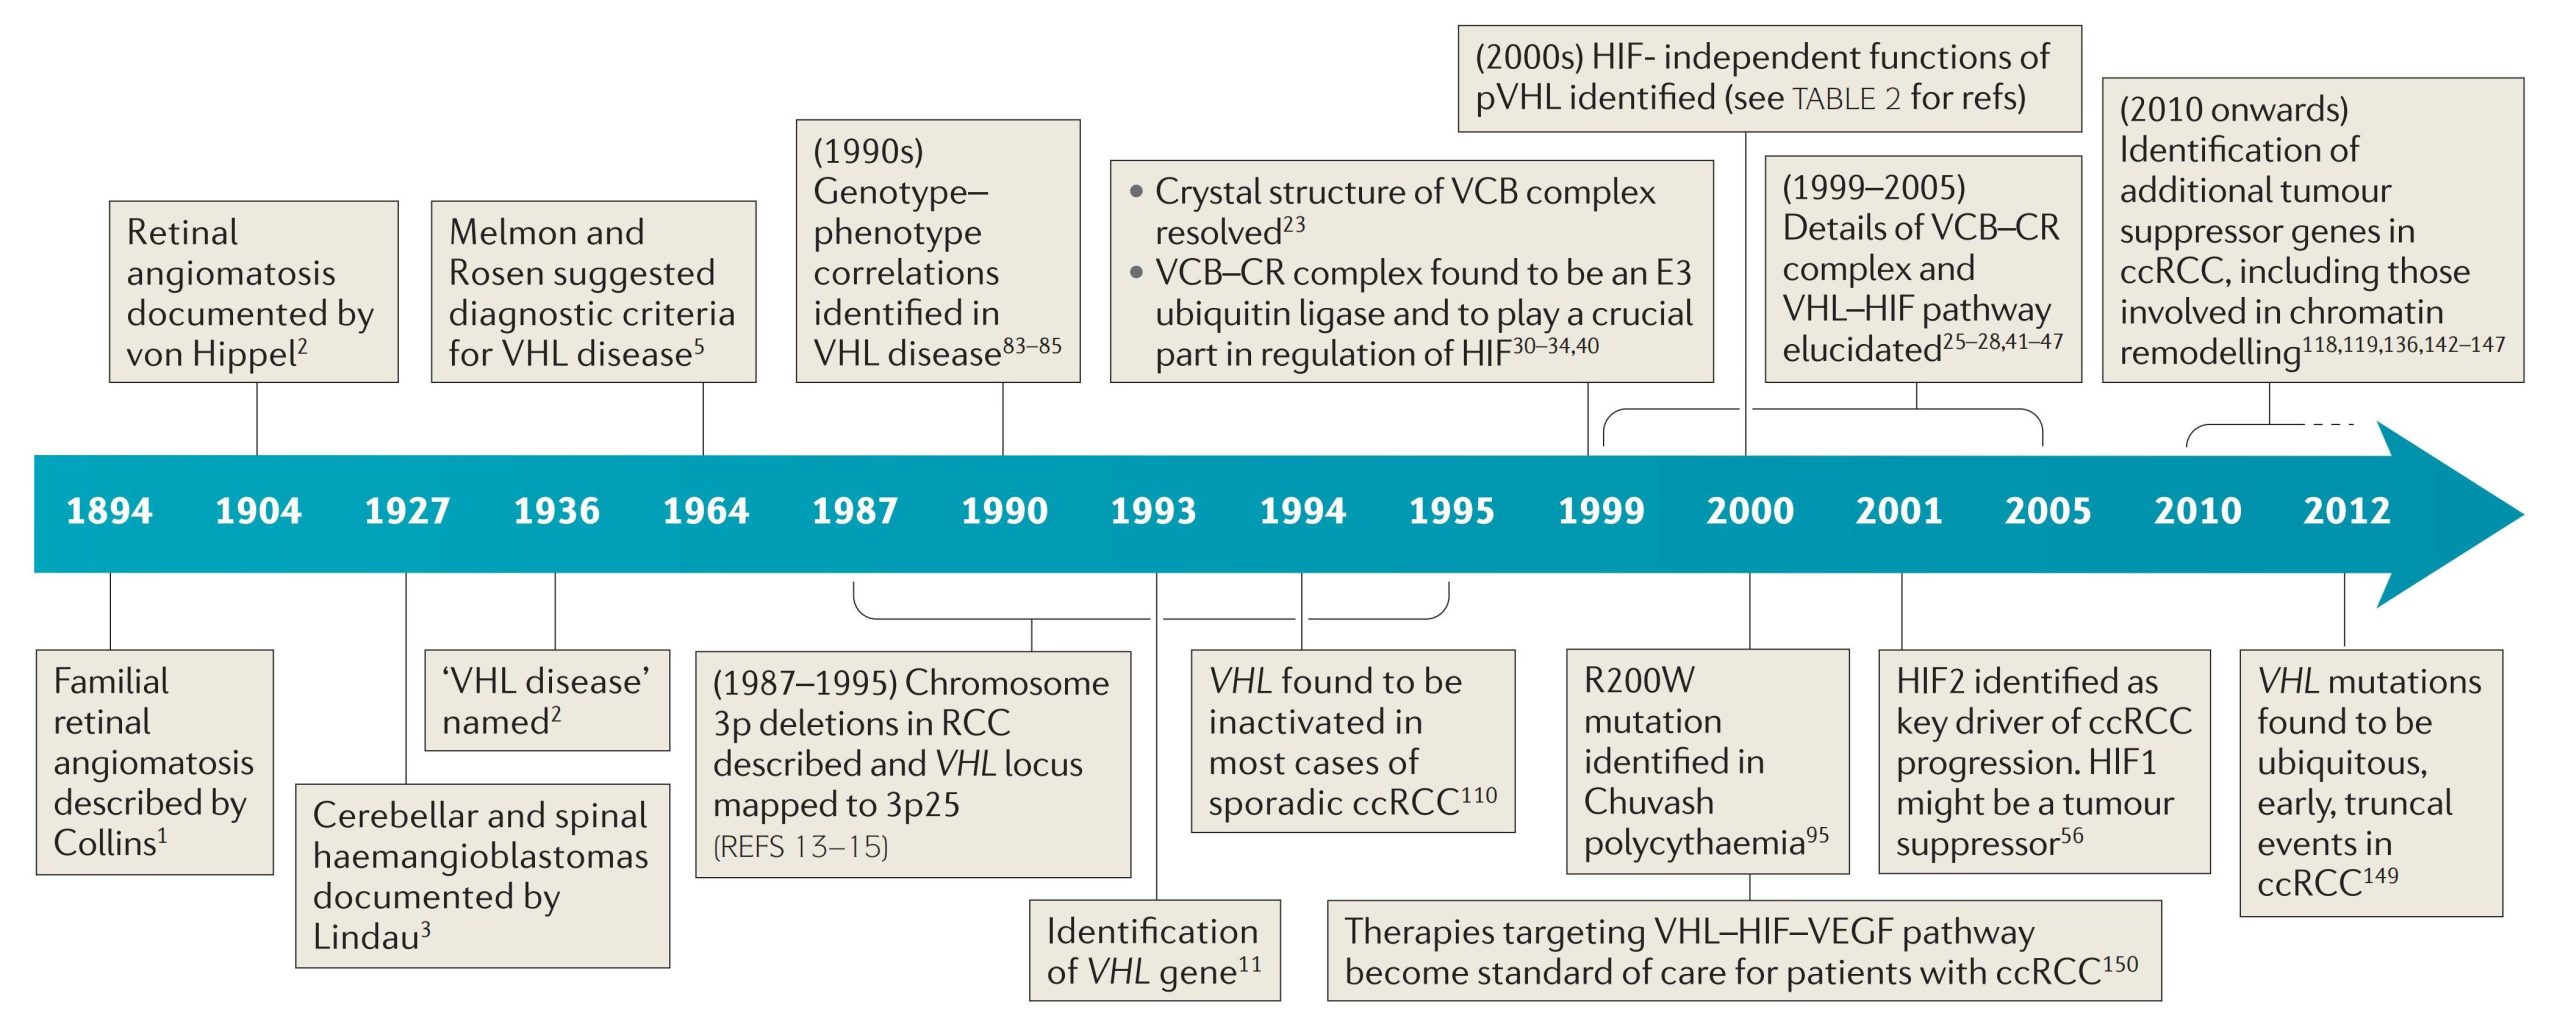
图1. VHL的研究史[1]。
pVHL介导的氧感知与HIF降解
VHL基因编码pVHL(VHL肿瘤抑制蛋白),pVHL是VHL基因的主要蛋白产物,也是氧感知和HIF降解机制的核心分子。2002年,Kaelin在VHL分子机制综述中系统介绍了pVHL的结构和复合物功能。pVHL主要有两种形式:pVHL30含213个氨基酸;pVHL19含160个氨基酸,由第54位密码子处的内部翻译起始产生,缺少pVHL30氨基端的酸性五肽重复区域。pVHL的α结构域结合Elongin C并参与复合物组装,β结构域形成底物停靠区域;pVHL与Elongin B、Elongin C、CUL2及RBX1组成E3泛素连接酶复合物,促使所识别底物发生多聚泛素化并进入蛋白酶体降解[3]。
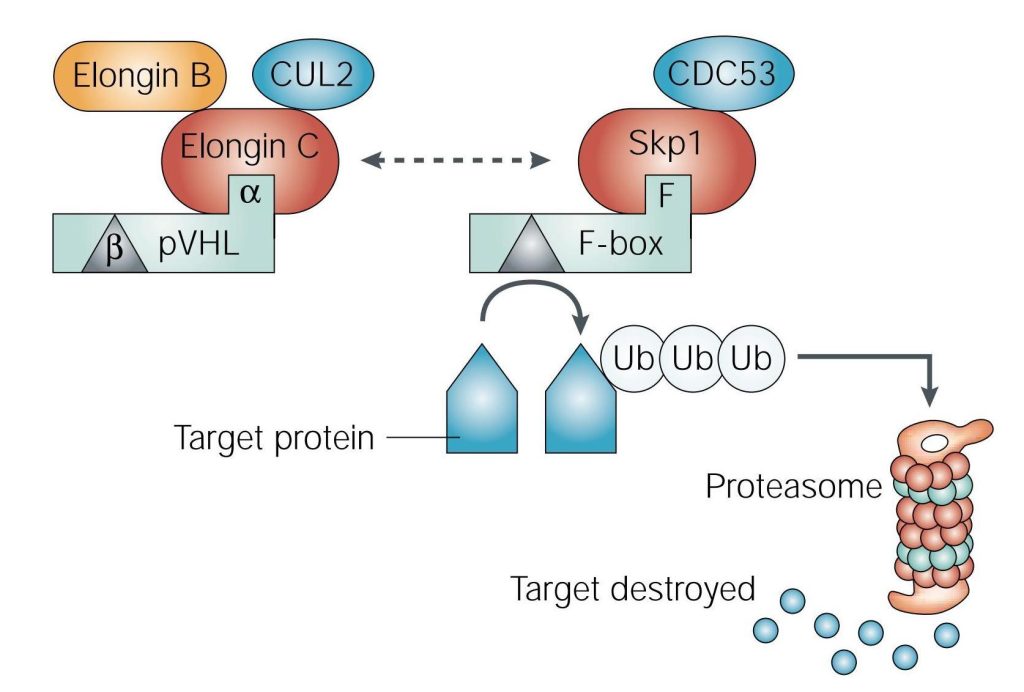
图2. pVHL复合物的组成及其介导的底物泛素化降解[3]。
在氧气充足时,PHD/EGLN家族羟化酶在HIF-1α和HIF-2α的氧依赖性降解区域,对其中一个或两个保守脯氨酸残基进行羟化;这一反应需要氧、亚铁离子和2-氧代戊二酸(α-酮戊二酸)。羟化后的HIF-1α和HIF-2α由pVHL的β结构域识别,随后被E3复合物多聚泛素化并送入蛋白酶体降解。与此同时,FIH1羟化HIF-1α和HIF-2α羧基端转录激活结构域中的天冬酰胺残基,阻止p300/CBP共激活因子结合,从而限制HIF转录活性[3][4][5]。
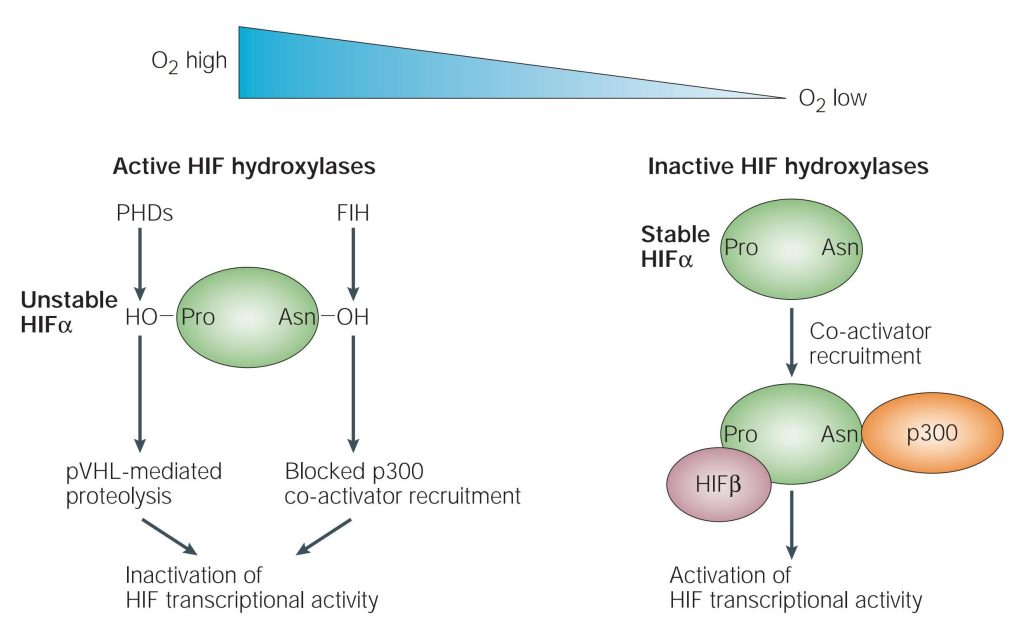
图3. 氧依赖性羟化对HIF-1α和HIF-2α稳定性与转录活性的双重调控[4]。
当氧气不足时,PHD/EGLN介导的脯氨酸羟化受到抑制,HIF-1α和HIF-2α因而稳定并进入细胞核,与HIF-1β(ARNT)形成异二聚体,结合缺氧反应元件(hypoxia response element,HRE),启动VEGF、EPO等靶基因转录。VHL失活会造成类似的结果:即使氧气充足,羟化后的HIF-1α和HIF-2α也不能被pVHL有效识别和降解,缺氧应答持续存在。在透明细胞肾癌中,HIF-2α的作用尤为突出[3][5]。
氧感知调控网络与pVHL的非HIF功能
在氧感知通路中,HIF-1与HIF-2的转录作用并不相同。Kaelin于2008年指出,在透明细胞肾癌中,HIF-2可促进肿瘤生长,而HIF-1在部分模型中可能具有抑制作用。Ivan和Kaelin于2017年进一步指出,低氧时HIF-1通常较早升高,并在约12小时内达到峰值后下降;HIF-2诱导较迟,但可维持较稳定的平台期,呈现急性应答与慢性适应的不同特征[5][6][7]。
这套系统还受到反馈调节和细胞代谢状态的影响。EGLN1和EGLN3本身属于HIF转录靶基因,可能形成反馈环路;但在低氧条件下,EGLN酶活性受限,转录上调能否充分补偿这一限制仍不确定。2017年综述还讨论了非编码RNA参与反馈调节,但其中不少候选机制尚缺乏独立验证。代谢物琥珀酸和延胡索酸可与2-氧代戊二酸(α-酮戊二酸)竞争,从而抑制EGLN;此外,EGLN1在常氧下还可羟化AKT1/2蛋白,说明氧感知系统能够与代谢和生长信号相互连接。HIF-1下游的miR-210及相关编码基因可抑制线粒体呼吸、降低局部氧消耗,从而形成反馈调节[6]。
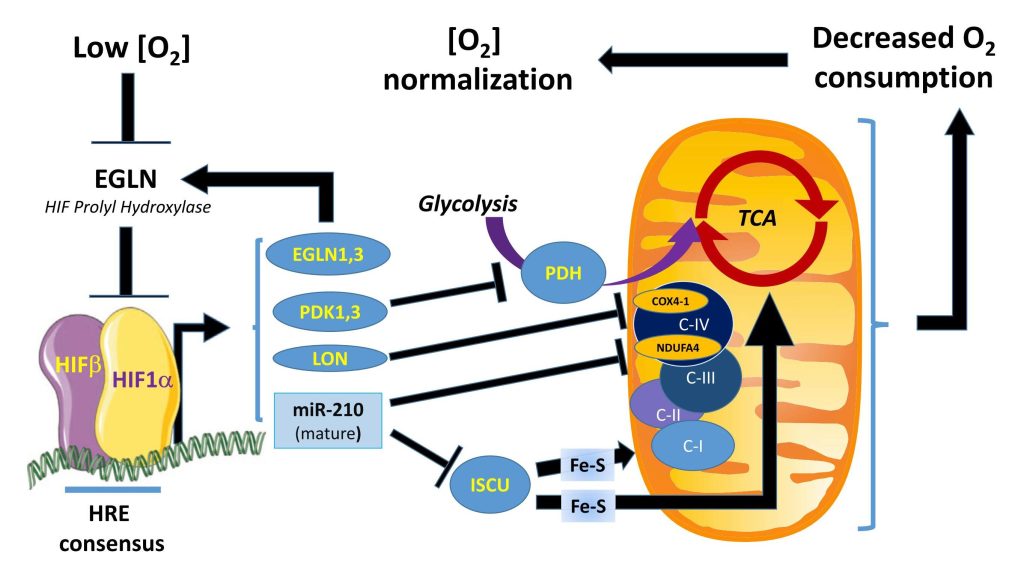
图4. HIF-1下游编码基因与miR-210共同参与的氧感知反馈调控[6]。
pVHL的作用并不局限于HIF降解。Kaelin于2008年总结的非HIF功能包括:pVHL30可结合并稳定微管,支持初级纤毛维持;VHL功能丧失与纤毛缺失相关,可能参与内脏囊肿形成。pVHL还可结合纤连蛋白和羟化胶原IV,参与细胞外基质组装;VHL缺失会破坏基质组织。在特定细胞环境中,VHL相关信号还参与生长因子撤除或其他应激后的细胞凋亡,但这些作用的具体机制仍未完全厘清[5]。
在透明细胞肾癌研究中,Liao、Hu和Zhang于2024年将已报道的pVHL非HIF调控对象概括为E3泛素连接酶底物和pVHL结合蛋白。ZHX2属于E3连接酶底物:经EGLN介导的脯氨酸羟化后,ZHX2被pVHL识别、泛素化并降解;未被降解的ZHX2可通过NF-κB促进肿瘤生长。SFMBT1也可在羟化后被pVHL识别,其下游SPHK1可能参与肿瘤生长,但该通路能否单独解释相关表型尚未确定。AKT则属于pVHL结合蛋白:EGLN1在常氧下羟化AKT后,pVHL促进PP2A与磷酸化AKT结合,降低其激酶活性而不改变总蛋白量。SETDB1也是EGLN–pVHL通路的底物;低氧可使其稳定,并有助于转座子抑制和基因组稳定。该综述同时指出,多数非HIF靶点的证据来自单个研究团队,部分候选靶点在体外尚未显示PHD介导的羟化,仍需进一步研究[8]。
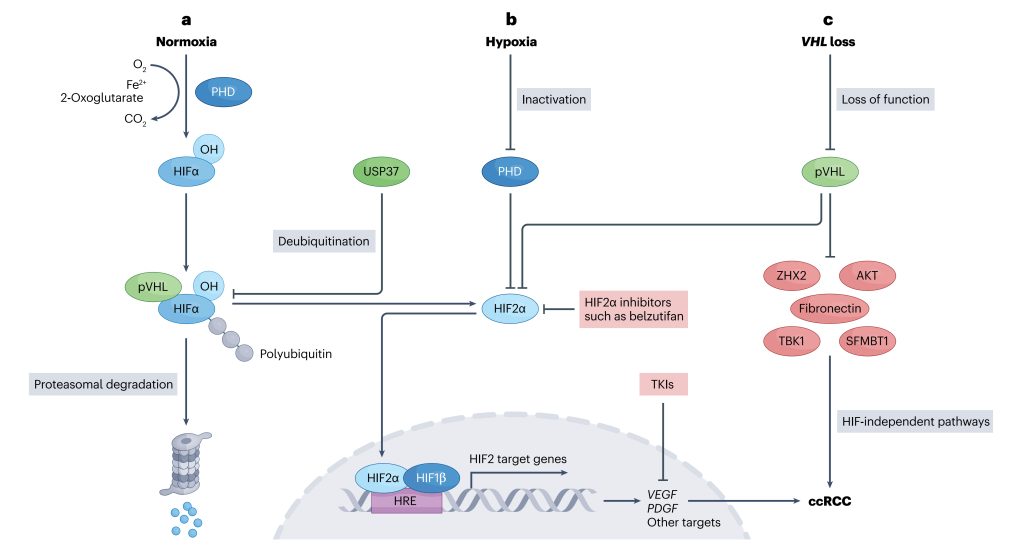
图5. 透明细胞肾癌中pVHL介导的HIF依赖性及部分非HIF依赖性调控[8]。
VHL基因检测在临床实践中的应用
在临床实践中,VHL检测的核心是识别胚系变异及其所代表的遗传性肿瘤易感背景。VHL为常染色体显性遗传;Carlo等在家族性肾癌综述中指出,VHL相关肿瘤常发生另一正常等位基因丢失,同一患者的不同肿瘤灶还可能来自相互独立的克隆。因此,胚系变异构成多器官肿瘤易感基础,而各肿瘤灶仍可沿不同的体细胞演化路径发展[9]。
识别胚系VHL变异后,还需结合变异类型理解不同肿瘤表型的风险倾向。2015年Gossage等和2022年Kaelin的综述指出,截短变异和外显子缺失较多见于1型VHL综合征,通常与肾细胞癌及血管母细胞瘤风险相关;错义变异较多见于2型,常与嗜铬细胞瘤风险相关。2型还可按肾细胞癌风险进一步分为2A型和2B型,2C型主要表现为嗜铬细胞瘤。上述关联反映的是群体层面的风险倾向,不能据此确定个体是否一定发病[1][7]。
在检测适用人群方面,《中国 von Hippel-Lindau 综合征诊治专家共识(2025版)》指出,基因诊断是确诊VHL综合征的“金标准”,建议临床诊断符合VHL综合征者进行外周血胚系检测。共识将多发性肾脏和胰腺囊肿、多发性胰腺神经内分泌肿瘤、内淋巴囊肿瘤,或45岁以下的中枢神经系统血管母细胞瘤列为需要考虑检测的临床线索;有VHL综合征家族史或家系中已确认致病变异的一级亲属、单发视网膜或中枢神经系统血管母细胞瘤患者、家族性或双侧嗜铬细胞瘤患者,以及家族性、多发或早发肾癌患者,也属于需要重点评估的人群。对于常规检测阴性但临床高度疑似的病例,共识建议联合分析肿瘤组织和外周血,以减少漏检[10]。
在肾癌场景中,《中国家族遗传性肿瘤临床诊疗专家共识(2021年版)(6)—家族遗传性肾癌》将发病早于46岁、双侧或多发肾癌及肾癌家族史列为遗传性肾癌风险线索,并建议结合临床表现、发病年龄和病理类型选择易感基因胚系检测。对于有VHL家族史或伴有其他VHL相关器官表型的透明细胞肾癌患者,该共识提出可进行VHL基因检测[11]。
肿瘤组织结果也需要与胚系检测分开解释。2025年Rednam等发表的VHL监测综述提出,儿童肿瘤组织检测发现VHL致病或可能致病变异时,应进一步进行胚系VHL分析。若胚系检测结果为意义未明变异,可结合家系资料和肿瘤中的VHL变异辅助判断;单发VHL相关肿瘤且胚系检测阴性者可先按散发病例考虑,之后若出现其他VHL相关肿瘤,再评估嵌合可能。由于VHL为常染色体显性遗传,已确认致病变异的携带者将变异传给每名子代的概率为50%;识别家系变异后,可通过遗传咨询和家系级联检测评估亲属风险[10][12]。
总结
VHL基因研究从遗传定位和1993年基因鉴定出发,逐步确立了VHL的肿瘤抑制作用,并揭示pVHL介导的氧感知、HIF降解以及多种非HIF调控功能。临床应用中,胚系检测应结合特征性临床表现、家族史和肿瘤组织结果综合解释;确认家系致病变异后,可进一步开展亲属级联检测和遗传风险评估。
参考文献:
[1] Gossage L, Eisen T, Maher ER. VHL, the story of a tumour suppressor gene. Nature Reviews Cancer, 2015, 15(1):55–64.
[2] Latif F, et al. Identification of the von Hippel-Lindau disease tumor suppressor gene. Science, 1993, 260(5112):1317–1320.
[3] Kaelin WG Jr. Molecular basis of the VHL hereditary cancer syndrome. Nature Reviews Cancer, 2002, 2(9):673–682.
[4] Schofield CJ, Ratcliffe PJ. Oxygen sensing by HIF hydroxylases. Nature Reviews Molecular Cell Biology, 2004, 5(5):343–354.
[5] Kaelin WG Jr. The von Hippel-Lindau tumour suppressor protein: O2 sensing and cancer. Nature Reviews Cancer, 2008, 8(11):865–873.
[6] Ivan M, Kaelin WG Jr. The EGLN-HIF O2-Sensing System: Multiple Inputs and Feedbacks. Molecular Cell, 2017, 66(6):772–779.
[7] Kaelin WG Jr. Von Hippel-Lindau disease: insights into oxygen sensing, protein degradation, and cancer. The Journal of Clinical Investigation, 2022, 132(18):e162480.
[8] Liao C, Hu L, Zhang Q. Von Hippel–Lindau protein signalling in clear cell renal cell carcinoma. Nature Reviews Urology, 2024, 21(11):662–675.
[9] Carlo MI, et al. Familial Kidney Cancer: Implications of New Syndromes and Molecular Insights. European Urology, 2019, 76(6):754–764.
[10] 中华医学会罕见病分会、北京医学会罕见病分会、中华医学会泌尿外科学分会中国泌尿系统遗传及罕见病联盟. 中国 von Hippel‑Lindau 综合征诊治专家共识(2025版). 中华医学杂志, 2025, 105(48):4441–4452.
[11] 中国抗癌协会家族遗传性肿瘤专业委员会. 中国家族遗传性肿瘤临床诊疗专家共识(2021年版)(6)—家族遗传性肾癌. 中国肿瘤临床, 2022, 49(2):55–58.
[12] Rednam SP, et al. Update on Surveillance in Von Hippel-Lindau Disease. Clinical Cancer Research, 2025, 31(12):2271–2277.
TargetCap® Core Exome Panel v3.0
TargetCap@ Core Exome Panel v3.0基于伯科高品质DNA探针合成技术开发,全流程国产制造,由~40万条探针组成,以GRCh38/hg38人类参考基因组设计,参考Refseq、CCDS、ClinVar等数据库,覆盖19,524个基因,目标区域为33.9Mb。
捕获性能比较
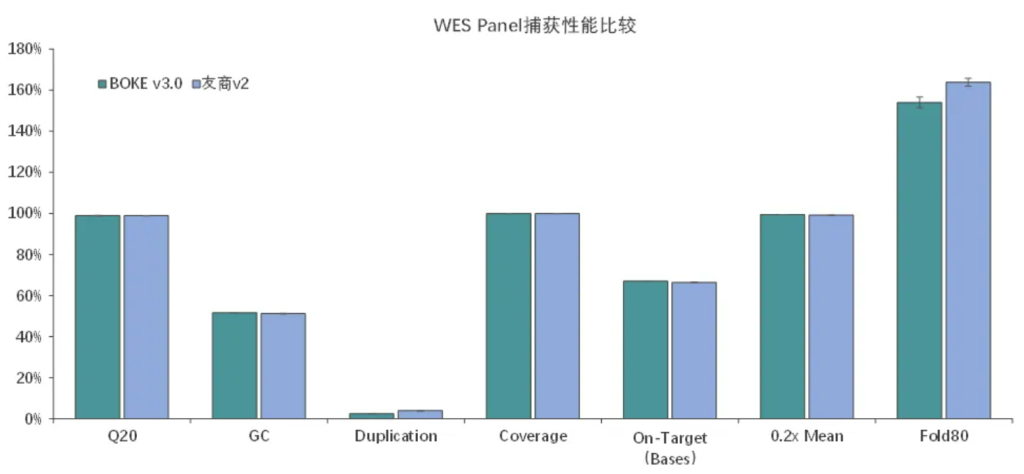
伯科全外芯片v3.0性能优异与国外友商同类型产品v2相当,中靶率、覆盖率、覆盖均一性等参数均达到国际领先水平。
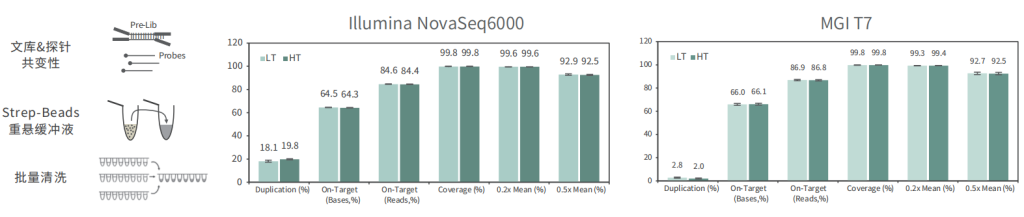
适配高通量流程平台
批次稳定
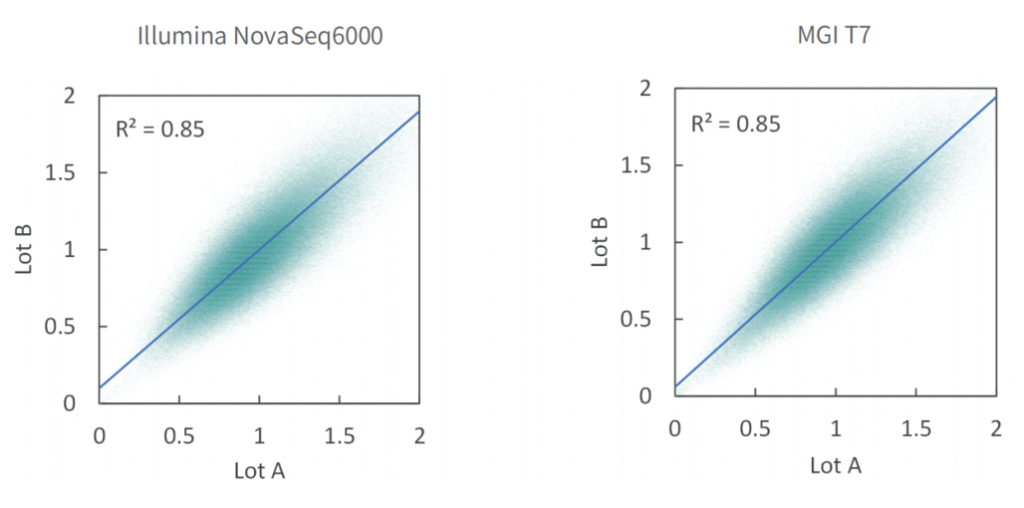
使用不同批次TargetCap® Core Exome Panel v3.0芯片对NA12878 gDNA进行捕获测序,结果显示,不同批次芯片在不同测序平台上均显示出优异的稳定性,不同位点的相对深度相关性高,批次稳定。
变异检测准确
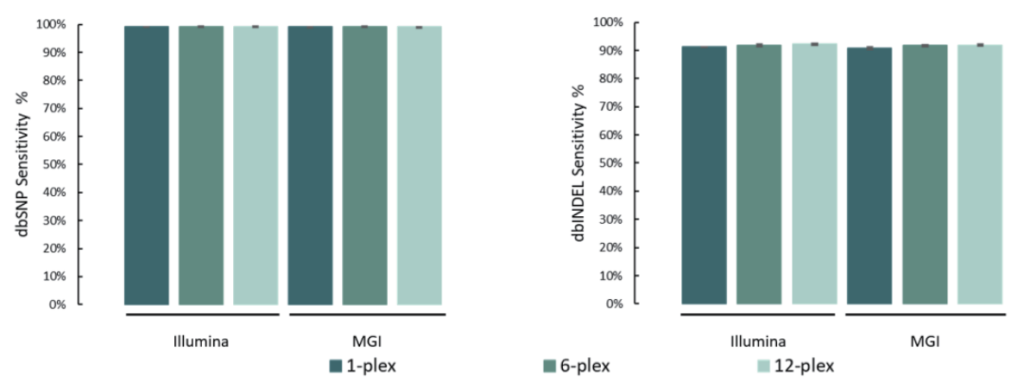
单核苷酸变异(SNV)和插入缺失 (INDEL)是基因组变异的常见形式,也是引起人类疾病的重要原因。
选取NA12878标准品,与预期SNV和INDEL变异进行比较。结果表明,在MGI与Illumina测序平台,SNP灵敏度为99.1%,INDEL灵敏度为91.6%。
添加线粒体模块临床样本表现
20例全血样本(S1#-S20#),采用1-4 Plex方式使用TargetCap® Core Exome Panel v3.0添加线粒体模块进行过夜杂交捕获;其中,S1#-S10#在Illumina NovaSeq X Plus平台测序, S11#-S20#在MGI MGISEQ-T7平台测序,均采用150PE模式测序。得到测序数据后,抽取8Gb数据进行生信分析。
两种测序平台的数据表现相近,平均深度分别为111x/115x (Illumina/MGI),中靶率优异均> 85%,覆盖均一性极佳(0.2X_MD≥99.3%);仅使用8Gb数据,高达98.5%的捕获区域达到了30X以上,99.5%的捕获区域达到20X以上,为临床样本检测提供了可靠的捕获数据。
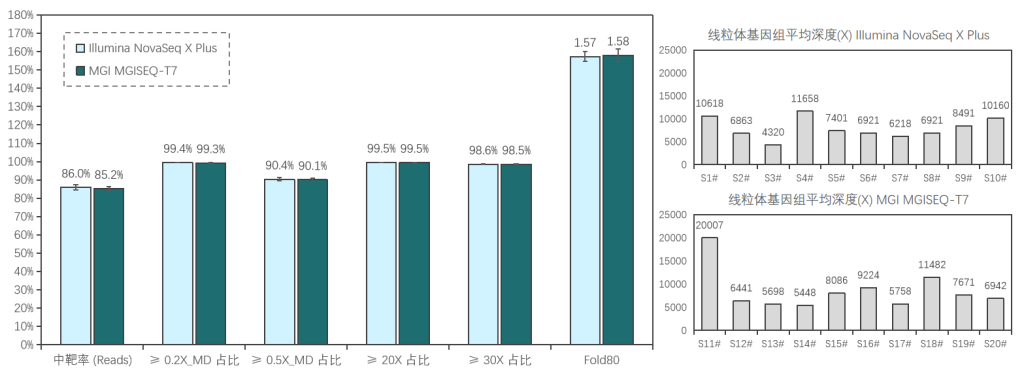
≥0.2X/0.5X_MD: Mean Depth,覆盖深度≥平均深度的0.2/0.5倍深度的区域占总区域的比例,用于表征覆盖均一性性能,越接近100%越好。
TargetCap® Core Exome Panel v7.0
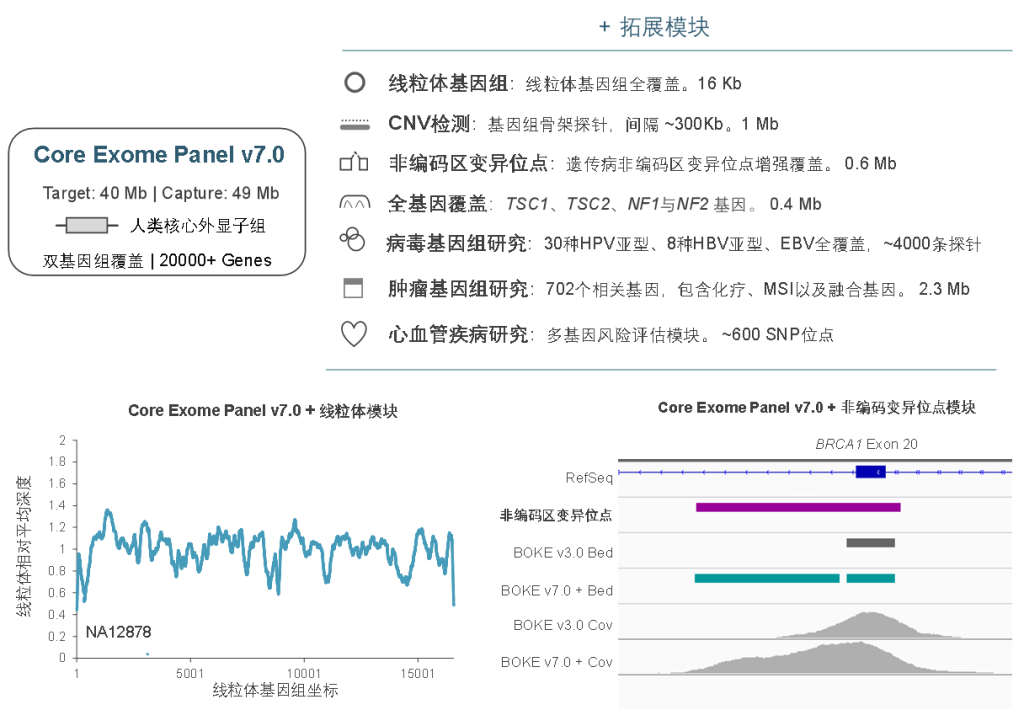
TargetCap® Core Exome Panel v7.0(下文简称BOKE v7.0),该WES Panel增强了基因组hg19传统研究区域的覆盖,兼顾 hg19 & hg38 双版本基因组,可以更好的保证临床科研与转化的延续性。目标区域和捕获区域大小分别为40Mb和49Mb,对 hg19 传统研究区域覆盖提升至99.7%(友商I-v1),hg38传统研究区域覆盖相近(友商A-v8)。同时,新添加数百个具有一定功能与表型的基因,总基因数量达到20000+。
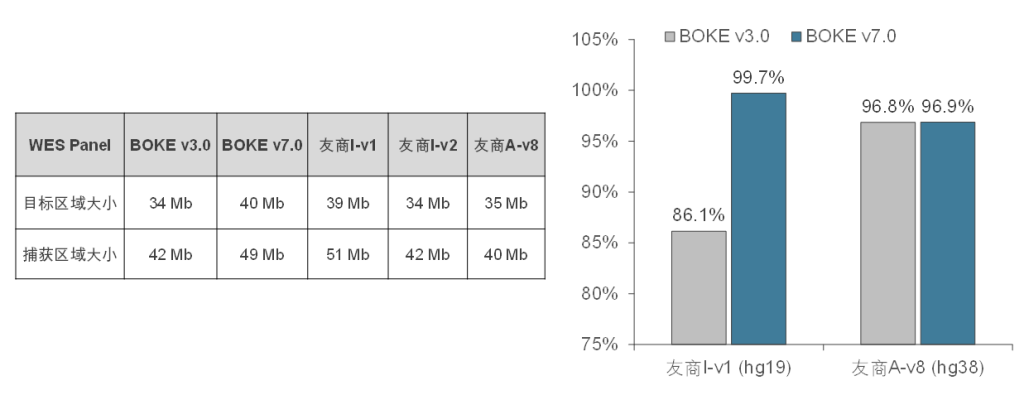
BOKE Core Exome Panel v7.0目标区域大小以及对不同友商产品目标区域的覆盖情况
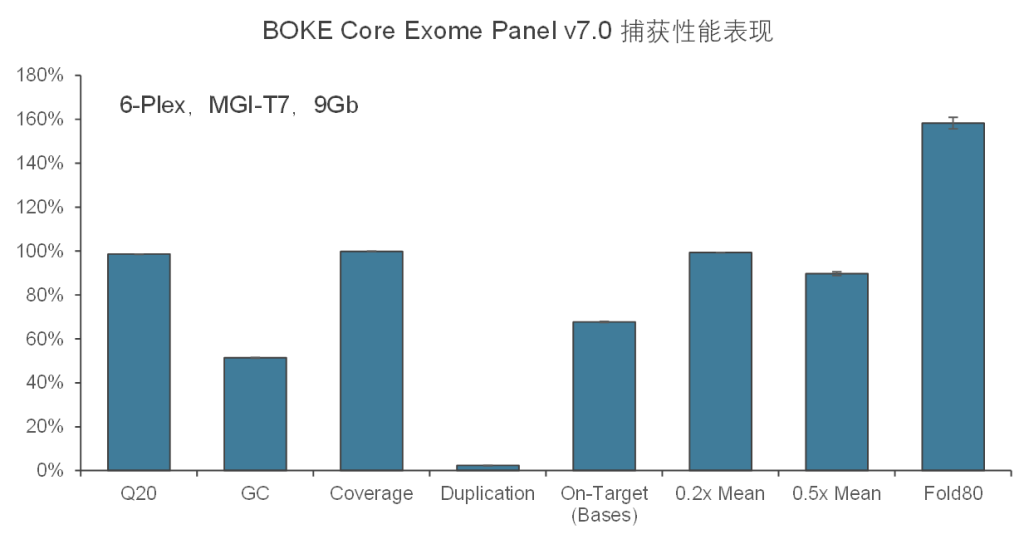
在捕获性能方面,TargetCap® Core Exome Panel v7.0依然表现优异,与TargetCap® Core Exome Panel v3.0表现相近。在测序9Gb条件下,平均深度达到110x左右,20x和30x以上区域占比分别为99.5%和98.5%,Fold 80为1.5-1.6之间,与国际领先产品数据表现相当。
同时,TargetCap® Core Exome Panel v7.0也可灵活的与拓展模块组合使用,满足不同场景的临床研究的需求及转化应用,包括线粒体、遗传病非编码区变异位点、单基因全覆盖、病毒基因组、肿瘤全景变异检测、重大疾病多基因风险评估模块等。此外,伯科公司自研自造的寡核苷酸合成平台可以快速响应个性化定制的需求,为人类基因组分子遗传学的研究与转化,提供更加全面高效的解决方案。