ATM:DNA双链断裂应答与肿瘤遗传风险
- boke
- 2026-09-22
- 5:03 下午
ATM 基因
ATM(ATM serine/threonine kinase)位于11号染色体长臂11q22.3,基因组跨度约146 kb,含67个外显子。ATM编码PI3/PI4激酶家族的丝氨酸/苏氨酸蛋白激酶,作为细胞周期检查点激酶,磷酸化p53、BRCA1、CHK2、RAD17、RAD9和NBS1等下游蛋白,并与密切相关的激酶ATR共同参与细胞对DNA损伤的应答和基因组稳定性维持。该基因变异与常染色体隐性遗传病共济失调毛细血管扩张症(ataxia-telangiectasia,A-T)相关[1]。目前,ATM的致病性(Pathogenic)变异为2509个,可能致病性(Likely pathogenic)变异为625个,另有676个位点归入致病性/可能致病性综合分类。
ATM 与A-T的发现
对ATM的认识始于共济失调毛细血管扩张症(A-T)。该病由Syllaba和Henner首先报道,后由Boder和Sedgwick界定为独立的常染色体隐性遗传病[2]。该病属于基因组不稳定综合征,细胞具有辐射敏感和染色体不稳定等特征[3]。A-T由ATM蛋白激酶活性丧失引起,源于ATM基因的无义或错义变异[4]。
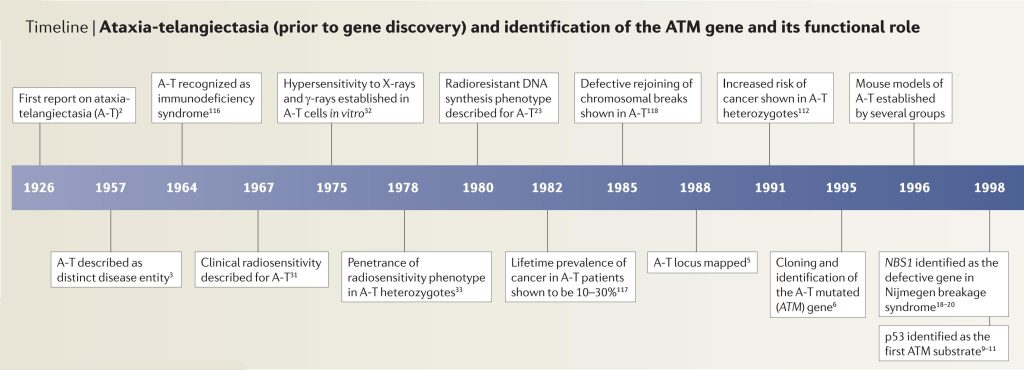
图1. 共济失调毛细血管扩张症(基因发现前)及ATM基因的识别及其功能作用[2]
ATM 基因的鉴定
ATM位点最初于1988年定位于11q22-23,随后于1995年鉴定出该基因[5]。ATM蛋白属于磷酸肌醇3-激酶相关激酶(PIKK)家族,其羧基端激酶结构域与磷脂酰肌醇3-激酶在结构上相关;同一家族中,ATM、DNA-PKcs和ATR均参与DNA损伤应答[4]。ATM的激酶活性通常针对谷氨酰胺前的丝氨酸或苏氨酸残基(SQ-TQ基序),已鉴定出数百种底物[4]。人类ATM蛋白分子量约350 kDa,由3056个氨基酸组成[6]。
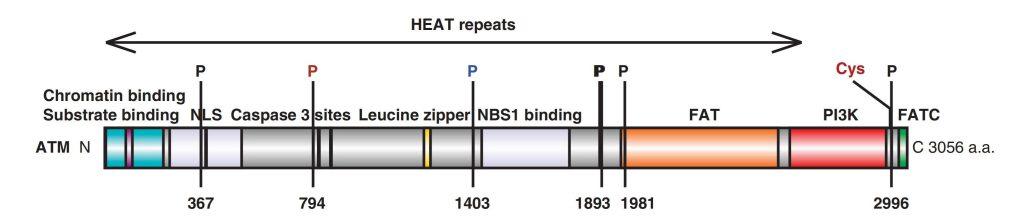
图2. 人类ATM的结构域组成[7]
DNA双链断裂应答中的 ATM
基因组稳定性的维持依赖于细胞识别并修复DNA损伤、有序推进细胞周期,以及保护染色体末端[8]。DNA双链断裂(DSB)是严重的DNA损伤,可激活由ATM主导的信号网络;ATM通过磷酸化各分支中的关键蛋白来协调这一网络[9]。在真核细胞中,由ATM和ATR激酶调控的DNA损伤应答(DDR)是细胞应对DNA损伤的中心通路。二者均可被DNA损伤和复制应激激活,但对损伤类型的选择性不同,功能并不冗余:ATM主要响应DSB,ATR主要响应复制应激和单链DNA;二者常协同传递损伤信号[10]。脊椎动物细胞中,DDR还由ATM、ATR以及DNA-PK共同控制[11]。
经典的ATM激活依赖于DSB和MRN复合体(MRE11、RAD50和NBS1):MRN将ATM同源二聚体募集至损伤部位,诱导其单体化,并促进ATM单体与DNA末端及底物相互作用[4][7]。未激活的ATM以非共价连接的二聚体形式存在[7]。ATM激活后磷酸化BRCA1、CHK2和p53等底物,进而影响DNA修复、细胞周期阻滞和凋亡等过程[2][9][10]。A-T细胞在辐射后不能有效减缓或停止细胞周期进展,表现为辐射抗性DNA合成,提示检查点缺陷与其基因组不稳定有关[7]。ATM还参与端粒保护;A-T患者来源细胞可见染色体端端融合[8]。
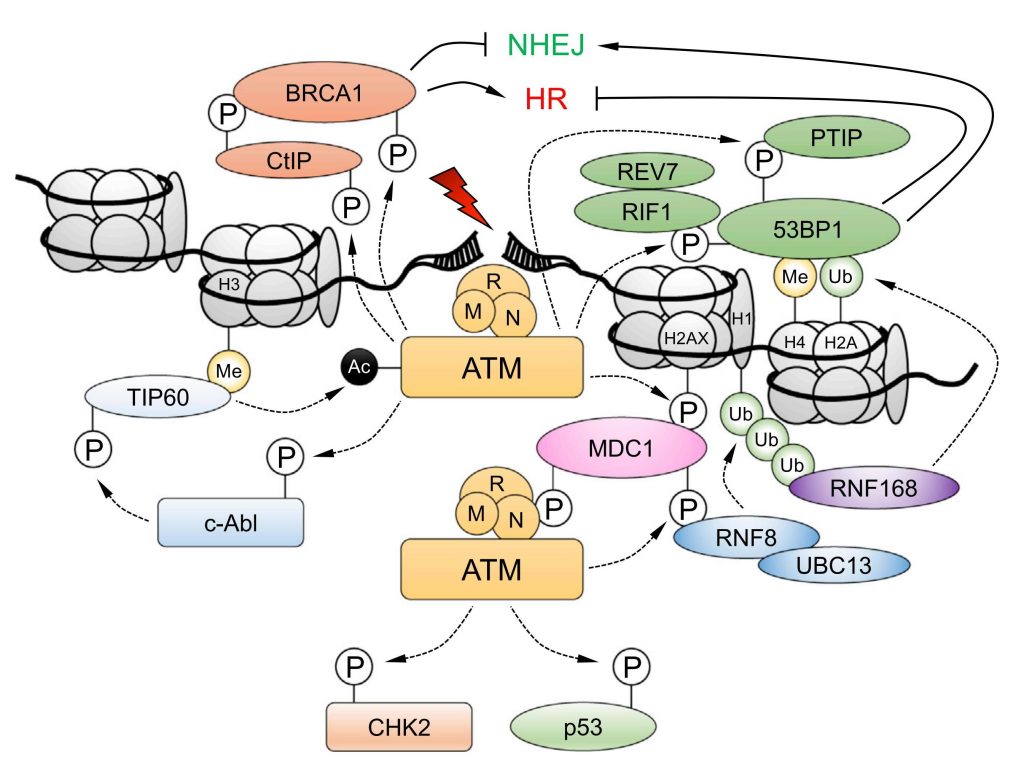
图3. DSB处ATM的募集与染色质信号扩增
ATM与MRN复合体在断裂部位激活,磷酸化CHK2、p53等底物,并影响同源重组与非同源末端连接的选择[11]
ATM的功能并不限于DSB。ATM介导的磷酸化既参与其他类型的基因毒应激,也参与维持细胞稳态[12]。除与MRN介导、由DSB启动的经典通路外,ATM还可被其他细胞应激以非经典方式激活,这两种方式均可能与ATM的肿瘤抑制作用有关[7]。ATM缺失导致活性氧平衡扰动和持续氧化应激[13]。ATM还可通过氧化依赖途径激活,该途径不依赖DSB或MRN,而与ATM单体之间的二硫键形成有关[4]。
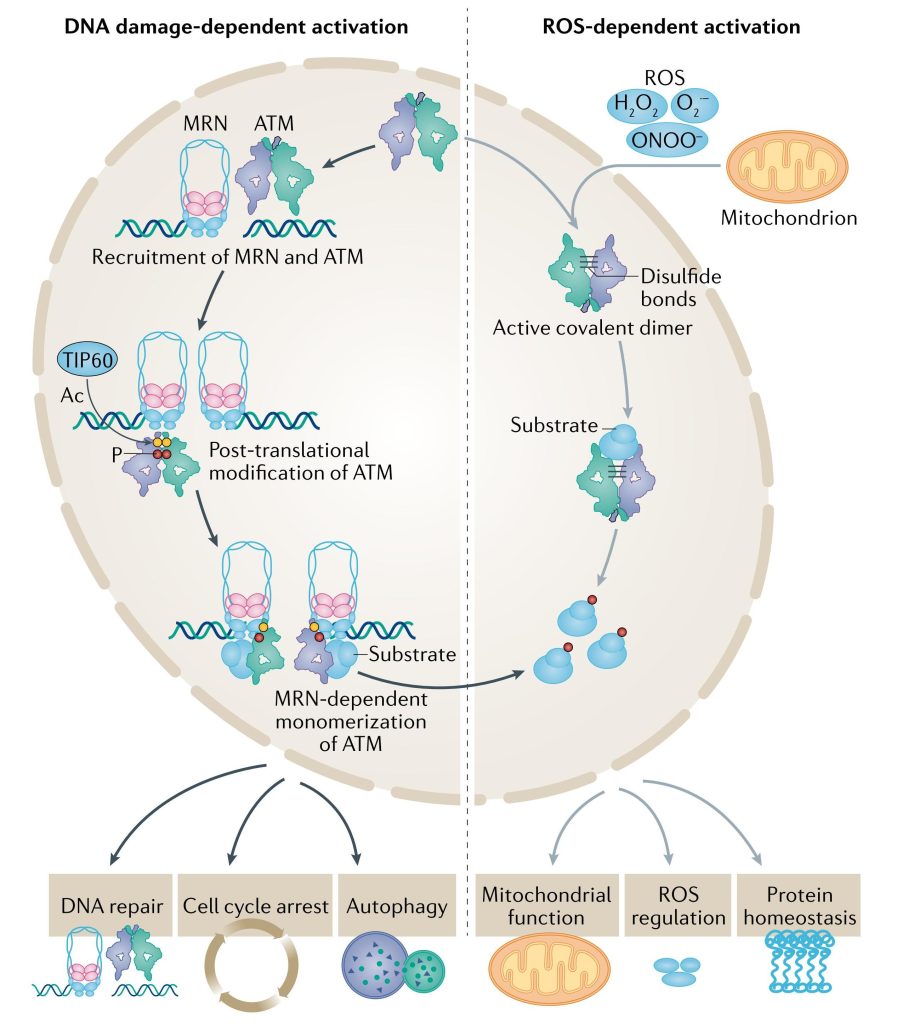
图4. ATM的两种激活途径
左侧为依赖DNA损伤和MRN的经典激活,右侧为依赖活性氧、形成共价二聚体的激活[4]
双等位基因与杂合胚系 ATM 变异
同一基因的胚系变异,因等位基因剂量不同而产生不同的生物学后果。双等位基因ATM活性丧失导致儿童期起病的A-T,以小脑变性、免疫缺陷、辐射敏感和淋巴系肿瘤易感为突出表现[3][4]。杂合携带者并不表现为A-T。A-T患者母亲的乳腺癌超额风险可追溯至20世纪70年代末,并在后续研究中得到证实[5]。散发性乳腺癌中ATM所在区域的杂合性缺失可见于约40%的肿瘤[6]。
ATM 胚系变异在临床实践中的应用
ATM杂合胚系致病性或可能致病性变异属于中等外显。多数此类变异使女性乳腺癌风险升高约2至3倍,部分错义变异相关风险可能更高;胰腺癌、前列腺癌和胃癌风险亦升高,结直肠癌、卵巢癌和黑色素瘤的关联较弱,尚需更大规模研究确认[5]。人群中ATM变异携带率约0.35%;c.7271T>G(p.Val2424Gly)相关乳腺癌风险高于多数其他ATM变异,约升高4倍[6]。ATM相关乳腺癌主要与雌激素受体阳性相关;雌激素受体阴性及三阴性乳腺癌未见显著关联[5]。风险还受家族史及其他修饰因素影响[5]。
中国2021年家族遗传性乳腺癌共识将BRCA1、BRCA2、TP53和PALB2列为高外显率基因,将CHEK2、ATM等列为中度外显率乳腺癌易感基因,约增加2至4倍发病风险[14]。《乳腺癌遗传咨询专家共识(2026)》将ATM归入中等外显率基因,终生乳腺癌风险约为20%至30%;建议结合家族史个体化制定监测起始年龄,有早发乳腺癌或胰腺癌一级亲属者可考虑自30岁起,无高危肿瘤家族史者可自40岁起,以乳腺X线联合超声为基础,致密乳腺可补充磁共振成像。该方案证据等级为Ⅳ级[15]。
在前列腺癌中,ATM与PALB2、CHEK2及错配修复基因等一同被列为DNA损伤修复相关易感基因。转移性前列腺癌中ATM胚系突变率约为1.6%[16]。中国2021年家族遗传性前列腺癌共识建议:已知家族成员携带相关致病变异、有明确相关肿瘤家族史,以及高风险、极高风险、局部进展或转移性前列腺癌患者,将ATM纳入DNA损伤修复基因胚系检测范围[16]。
美国医学遗传学与基因组学学会实践资源建议:ATM杂合致病变异携带者一般按个体化风险估计和所在国家指南接受加强乳腺监测,通常不常规推荐预防性乳房切除;可考虑前列腺癌监测;胰腺癌监测应结合家族史评估,并优先在相应国家指南或研究框架下考虑[5]。
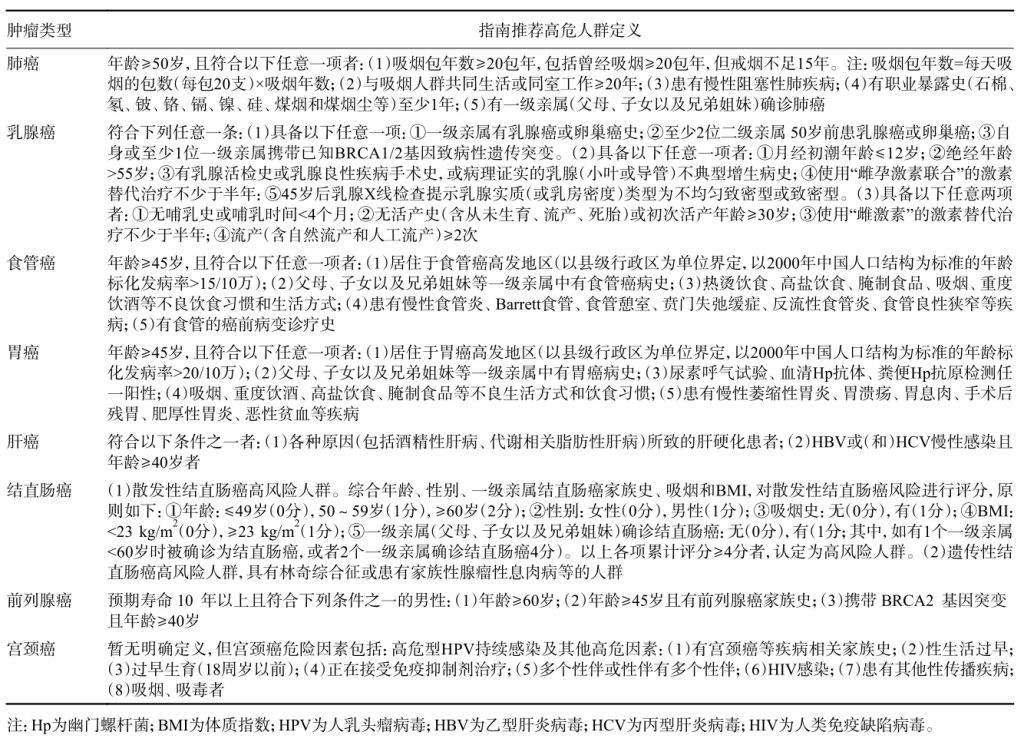
表1. 中国常见恶性肿瘤筛查指南及规范推荐的恶性肿瘤高危人群定义汇总表[17]
总结
ATM基因的定位和鉴定,使A-T由一种罕见遗传病转化为DNA损伤应答研究的范式[2]。ATM作为PIKK家族的激酶,在DSB处由MRN募集并激活,磷酸化p53、CHK2、BRCA1和NBS1等广泛底物,并与ATR、DNA-PK分工协作[4][9][10][11]。其功能还包括氧化应激应答、端粒维持和细胞稳态调节[8][12][13]。双等位基因ATM失活导致A-T;杂合胚系致病性变异属于中等外显,主要与雌激素受体阳性乳腺癌风险升高相关[3][5][14][15]。
参考文献:
[1] NCBI Gene. ATM serine/threonine kinase (Gene ID: 472). https://www.ncbi.nlm.nih.gov/gene/472.
[2] Lavin MF. Ataxia-telangiectasia: from a rare disorder to a paradigm for cell signalling and cancer. Nat Rev Mol Cell Biol, 2008, 9(10): 759-769.
[3] Rothblum-Oviatt C, et al. Ataxia telangiectasia: a review. Orphanet J Rare Dis, 2016, 11(1): 159.
[4] Lee JH, Paull TT. Cellular functions of the protein kinase ATM and their relevance to human disease. Nat Rev Mol Cell Biol, 2021, 22(12): 796-814.
[5] Pal T, et al. Management of individuals with heterozygous germline pathogenic variants in ATM: A clinical practice resource of the American College of Medical Genetics and Genomics (ACMG). Genet Med, 2025, 27(1): 101243.
[6] Stucci LS, et al. The ATM Gene in Breast Cancer: Its Relevance in Clinical Practice. Genes (Basel), 2021, 12(5): 727.
[7] Cremona CA, Behrens A. ATM signalling and cancer. Oncogene, 2014, 33(26): 3351-3360.
[8] Derheimer FA, Kastan MB. Multiple roles of ATM in monitoring and maintaining DNA integrity. FEBS Lett, 2010, 584(17): 3675-3681.
[9] Shiloh Y. ATM and related protein kinases: safeguarding genome integrity. Nat Rev Cancer, 2003, 3(3): 155-168.
[10] Maréchal A, Zou L. DNA damage sensing by the ATM and ATR kinases. Cold Spring Harb Perspect Biol, 2013, 5(9): a012716.
[11] Blackford AN, Jackson SP. ATM, ATR, and DNA-PK: The Trinity at the Heart of the DNA Damage Response. Mol Cell, 2017, 66(6): 801-817.
[12] Shiloh Y, Ziv Y. The ATM protein kinase: regulating the cellular response to genotoxic stress, and more. Nat Rev Mol Cell Biol, 2013, 14(4): 197-210.
[13] Barzilai A, Rotman G, Shiloh Y. ATM deficiency and oxidative stress: a new dimension of defective response to DNA damage. DNA Repair (Amst), 2002, 1(1): 3-25.
[14] 中国抗癌协会家族遗传性肿瘤专业委员会. 中国家族遗传性肿瘤临床诊疗专家共识(2021年版)(1)—家族遗传性乳腺癌. 中国肿瘤临床, 2021, 48(23): 1189-1195.
[15] 中国抗癌协会乳腺癌整合防筛专业委员会. 乳腺癌遗传咨询专家共识. 中华乳腺病杂志(电子版), 2026, 20(4): 197-206.
[16] 中国抗癌协会家族遗传性肿瘤专业委员会. 中国家族遗传性肿瘤临床诊疗专家共识(2021年版)(7)—家族遗传性前列腺癌. 中国肿瘤临床, 2022, 49(2): 59-63.
[17] 常见恶性肿瘤联合筛查专家组,常见恶性肿瘤联合筛查工作组. 常见恶性肿瘤联合筛查专家共识(2025版). 中国肿瘤临床, 2025, 52(14): 703-725.
TargetCap® Core Exome Panel v3.0
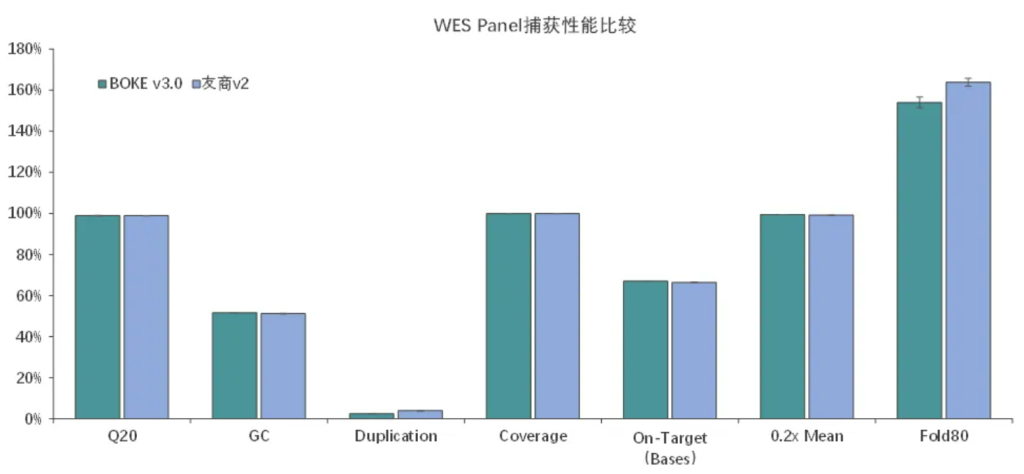
TargetCap@ Core Exome Panel v3.0基于伯科高品质DNA探针合成技术开发,全流程国产制造,由~40万条探针组成,以GRCh38/hg38人类参考基因组设计,参考Refseq、CCDS、ClinVar等数据库,覆盖19,524个基因,目标区域为33.9Mb。
捕获性能比较
伯科全外芯片v3.0性能优异与国外友商同类型产品v2相当,中靶率、覆盖率、覆盖均一性等参数均达到国际领先水平。
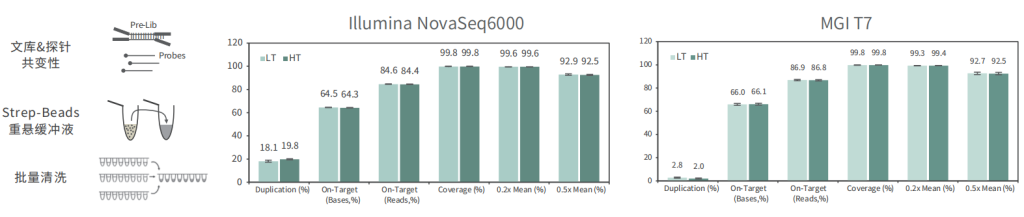
适配高通量流程平台
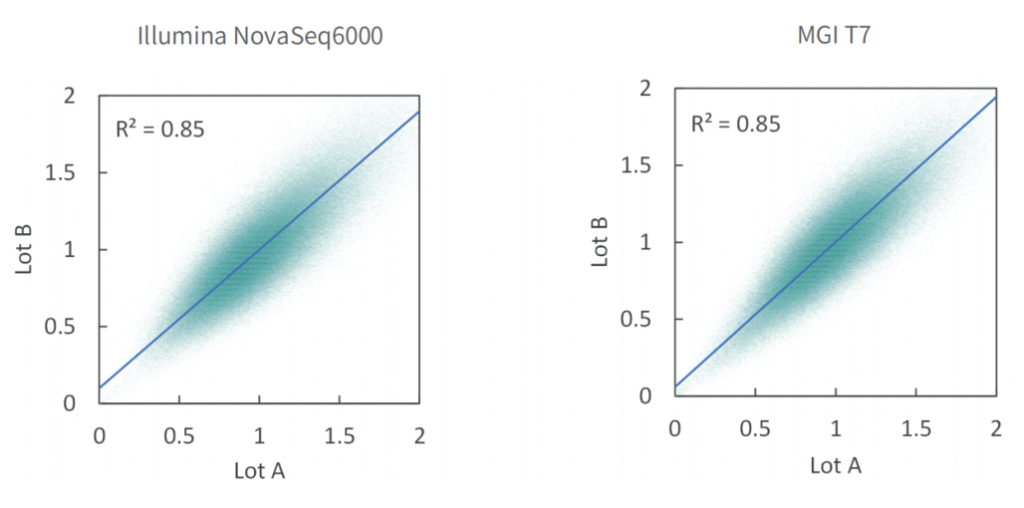
批次稳定
使用不同批次TargetCap® Core Exome Panel v3.0芯片对NA12878 gDNA进行捕获测序,结果显示,不同批次芯片在不同测序平台上均显示出优异的稳定性,不同位点的相对深度相关性高,批次稳定。
变异检测准确
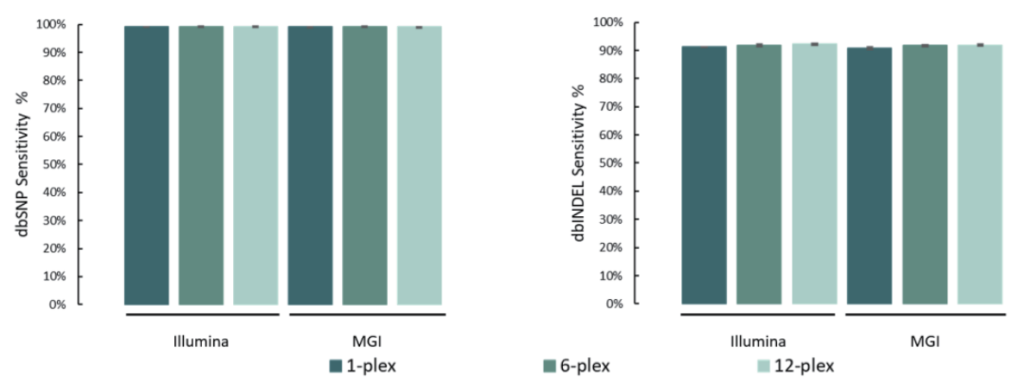
单核苷酸变异(SNV)和插入缺失 (INDEL)是基因组变异的常见形式,也是引起人类疾病的重要原因。
选取NA12878标准品,与预期SNV和INDEL变异进行比较。结果表明,在MGI与Illumina测序平台,SNP灵敏度为99.1%,INDEL灵敏度为91.6%。
添加线粒体模块临床样本表现
20例全血样本(S1#-S20#),采用1-4 Plex方式使用TargetCap® Core Exome Panel v3.0添加线粒体模块进行过夜杂交捕获;其中,S1#-S10#在Illumina NovaSeq X Plus平台测序, S11#-S20#在MGI MGISEQ-T7平台测序,均采用150PE模式测序。得到测序数据后,抽取8Gb数据进行生信分析。
两种测序平台的数据表现相近,平均深度分别为111x/115x (Illumina/MGI),中靶率优异均> 85%,覆盖均一性极佳(0.2X_MD≥99.3%);仅使用8Gb数据,高达98.5%的捕获区域达到了30X以上,99.5%的捕获区域达到20X以上,为临床样本检测提供了可靠的捕获数据。
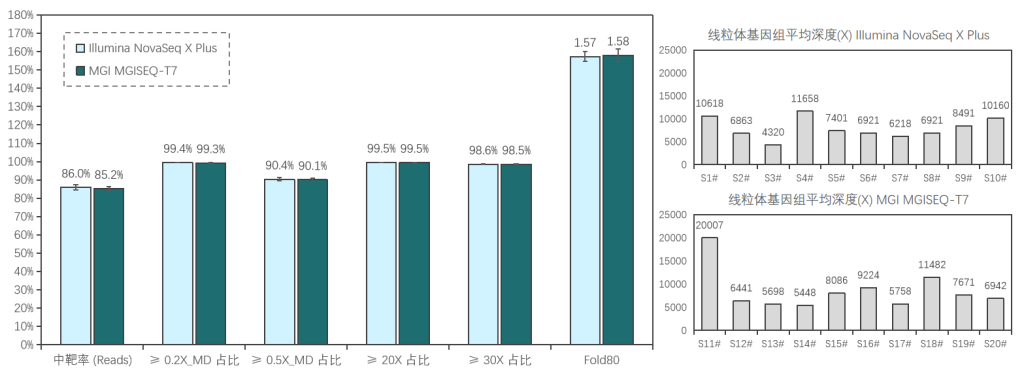
≥0.2X/0.5X_MD: Mean Depth,覆盖深度≥平均深度的0.2/0.5倍深度的区域占总区域的比例,用于表征覆盖均一性性能,越接近100%越好。
TargetCap® Core Exome Panel v7.0
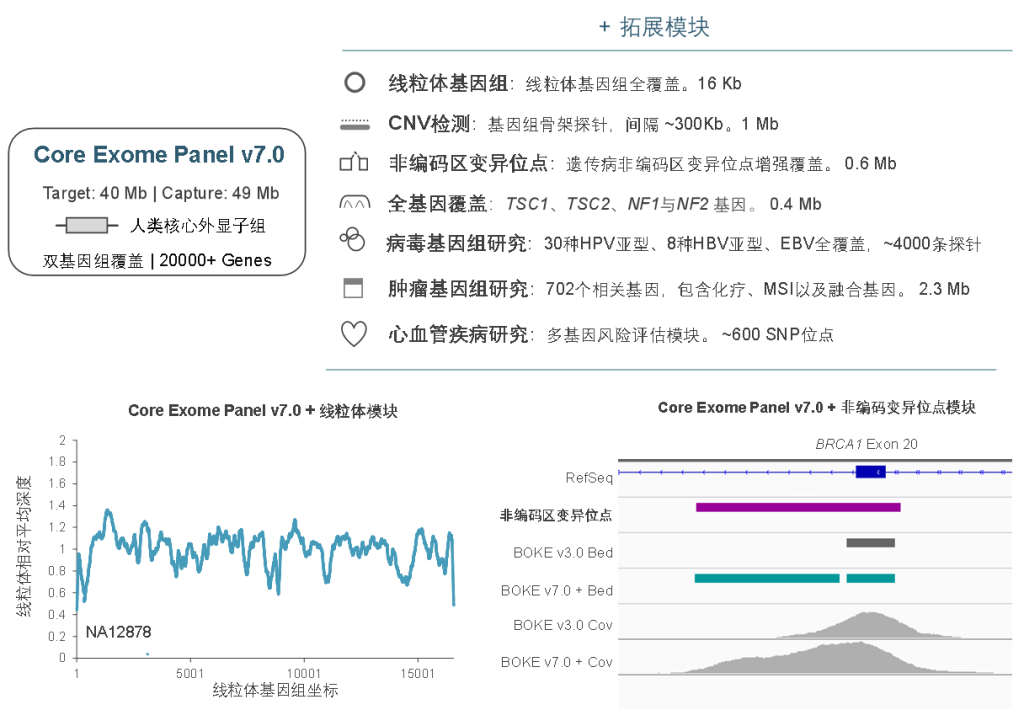
TargetCap® Core Exome Panel v7.0(下文简称BOKE v7.0),该WES Panel增强了基因组hg19传统研究区域的覆盖,兼顾 hg19 & hg38 双版本基因组,可以更好的保证临床科研与转化的延续性。目标区域和捕获区域大小分别为40Mb和49Mb,对 hg19 传统研究区域覆盖提升至99.7%(友商I-v1),hg38传统研究区域覆盖相近(友商A-v8)。同时,新添加数百个具有一定功能与表型的基因,总基因数量达到20000+。
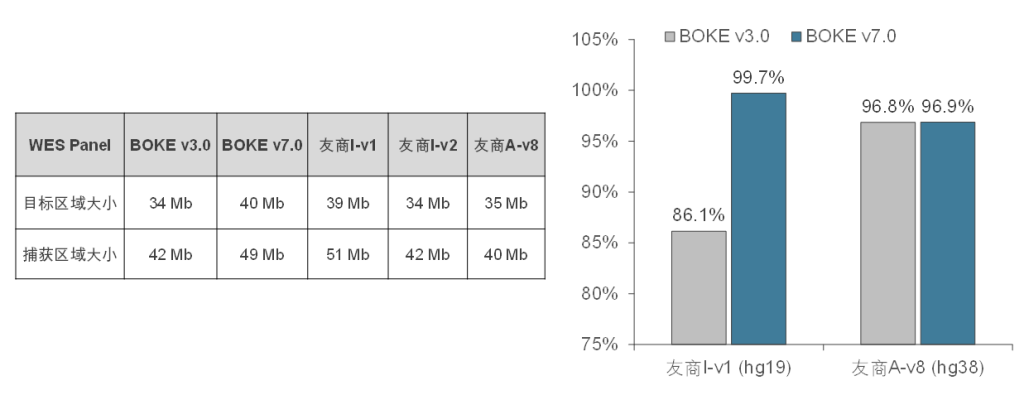
BOKE Core Exome Panel v7.0目标区域大小以及对不同友商产品目标区域的覆盖情况
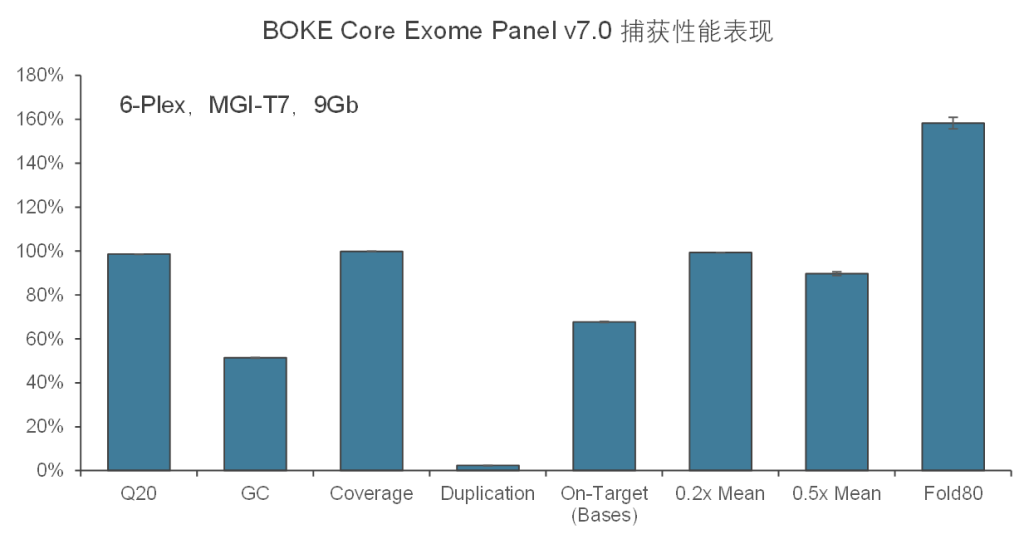
在捕获性能方面,TargetCap® Core Exome Panel v7.0依然表现优异,与TargetCap® Core Exome Panel v3.0表现相近。在测序9Gb条件下,平均深度达到110x左右,20x和30x以上区域占比分别为99.5%和98.5%,Fold 80为1.5-1.6之间,与国际领先产品数据表现相当。
同时,TargetCap® Core Exome Panel v7.0也可灵活的与拓展模块组合使用,满足不同场景的临床研究的需求及转化应用,包括线粒体、遗传病非编码区变异位点、单基因全覆盖、病毒基因组、肿瘤全景变异检测、重大疾病多基因风险评估模块等。此外,伯科公司自研自造的寡核苷酸合成平台可以快速响应个性化定制的需求,为人类基因组分子遗传学的研究与转化,提供更加全面高效的解决方案。