基因CDH1:E-cadherin介导的细胞黏附与遗传性肿瘤易感性
- boke
- 2026-11-20
- 9:29 上午
CDH1基因
CDH1(cadherin 1)位于16号染色体长臂16q22.1,基因组跨度约100 kb,含16个外显子。该基因编码经典钙黏蛋白E-cadherin,其蛋白包括5个胞外钙黏蛋白重复、跨膜区和高度保守的胞质尾部,参与钙依赖性细胞间黏附、上皮组织结构维持及细胞信号调控。CDH1功能异常与胃癌、乳腺癌、结直肠癌、甲状腺癌和卵巢癌等肿瘤相关;功能丧失可促进细胞增殖、侵袭和转移。Pathogenic(致病)位点为474个,Likely pathogenic(可能致病)位点为115个;Pathogenic/Likely pathogenic合并分类另有40个位点。
CDH1基因的发现史
E-cadherin蛋白最初以uvomorulin的名称进入研究视野。早期研究发现,这种钙离子依赖性细胞黏附分子参与小鼠胚胎压实、胚胎细胞聚集和成年肠上皮中间连接的形成。1988年,Mansouri等利用小鼠uvomorulin cDNA探针对人肝脏cDNA文库进行筛选,获得了人uvomorulin cDNA克隆;序列和蛋白氨基端信息支持其与此前称为cell-CAM 120/80的蛋白相对应。随后,相关研究将其编码基因定位于16号染色体长臂区域。随着序列和基因结构研究的推进,这一蛋白逐渐统一称为E-cadherin,其编码基因命名为CDH1。1995年,Berx等完成了人E-cadherin基因的克隆和结构分析,进一步明确了其与经典钙黏蛋白家族成员之间的结构同源性,并发现基因5′端邻近区域存在高密度CpG岛,为后续研究CDH1的转录调控和肿瘤相关改变提供了基础[1][2]。
1998年,Guilford等在多个早发、组织学低分化的弥漫型胃癌家系中发现,相关染色体区域与疾病表型显著连锁,并检出影响CDH1功能的胚系变异。不同家系中出现的异常剪接、移码和提前终止等失活性变异,共同确立了CDH1胚系失活与家族性弥漫型胃癌易感性之间的关系[3]。
E-cadherin的结构与细胞间黏附
CDH1编码的E-cadherin是上皮细胞黏着连接的核心组成部分。相邻细胞表面的E-cadherin首先通过胞外结构域发生同源性结合,使细胞保持稳定接触;胞质尾部再与p120-catenin、β-catenin和α-catenin形成连接复合体,并通过α-catenin、vinculin等与F-actin细胞骨架相连。由此,E-cadherin将细胞间黏附、细胞骨架和细胞内信号连接起来,既维持上皮组织的连续性,也为连接周转和信号调节提供结构基础[2][4][5][6]。
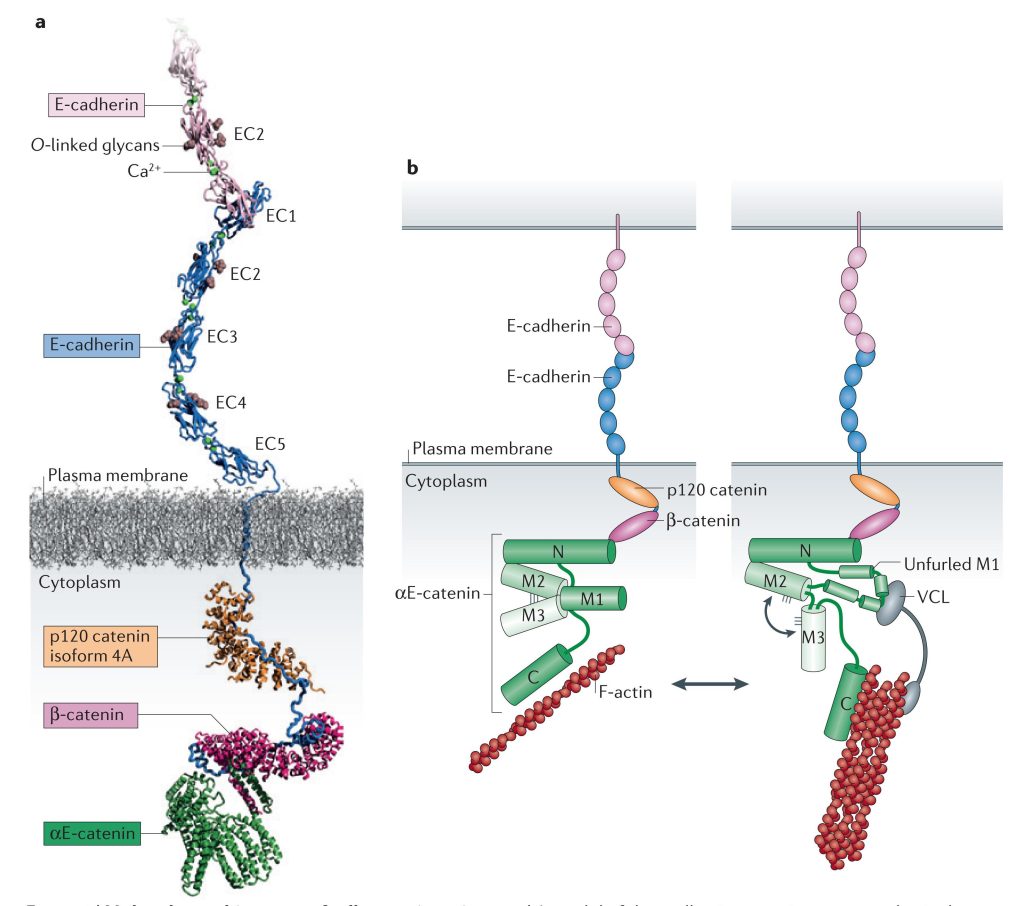
图1. E-cadherin与catenin复合体连接细胞骨架,构成黏着连接的核心结构[5]。
黏着连接同时承担细胞黏附、力学传递和信号调节功能。E-cadherin介导的细胞黏附、肌动蛋白—肌球蛋白收缩、细胞连接周转以及组织内部的细胞重排,共同调节组织的刚度、黏度、应力耗散和形态变化。在斑马鱼、果蝇和细胞系模型中,E-cadherin连接的改变可引起细胞排列、组织形态和力学性质变化,提示E-cadherin参与维持上皮组织的结构稳定性[4]。
E-cadherin介导的黏着连接与组织力学
上皮细胞彼此连接后,还需要共同承受组织张力。E-cadherin胞外同源结合在一定张力范围内表现出catch-bond特征,侧向聚簇可提高局部有效黏附能和再次结合概率;胞质侧的α-catenin、vinculin、肌动蛋白和非肌肉肌球蛋白II则参与张力传递与连接强化。当张力升高时,黏着连接可通过细胞骨架重排增强局部连接,维持上皮连续性;连接结构同时能够耗散应力,使细胞接触在不同时间尺度上表现出由弹性向流体样状态的转变[4]。
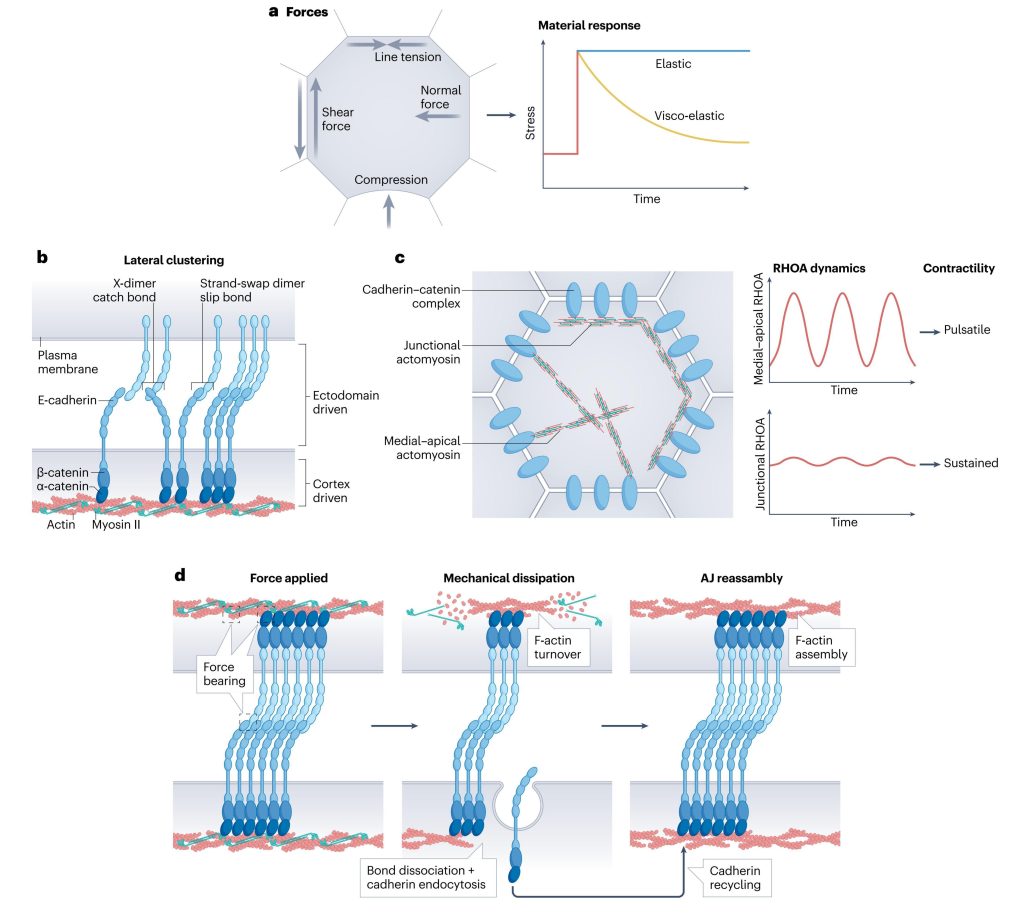
图2. 黏着连接对机械力的感受、传递与组织形态调节[4]。
在组织发育和修复过程中,黏着连接的重塑可把分子层面的黏附变化转化为细胞和组织的形态变化。RHO、RAP1及其相关效应分子参与肌动蛋白聚合、肌球蛋白收缩、黏着连接成熟和E-cadherin稳定。不同模型中的结果表明,E-cadherin的力学作用取决于细胞类型、组织结构、细胞骨架状态及外部力学环境[4][5]。
因此,黏着连接同时承担细胞黏附、力学传递和信号调节功能。E-cadherin黏附、肌动蛋白—肌球蛋白收缩、细胞连接周转以及组织内部的细胞重排,共同影响组织的刚度、黏度、应力耗散和形态变化。相关结果主要来自斑马鱼、果蝇和细胞系等模型,说明E-cadherin参与组织力学调节,但其适用范围与人类CDH1临床风险证据不同[4]。
E-cadherin介导的细胞接触与增殖调控
稳定的E-cadherin介导细胞接触有助于限制上皮细胞增殖。在部分细胞和组织模型中,这一状态伴随MST1/2和LATS1/2介导的YAP/TAZ磷酸化,使YAP/TAZ滞留于胞质或被降解;YAP/TAZ进入细胞核后则可与TEAD结合,促进增殖和细胞存活相关基因表达。细胞培养研究显示,缺失E-cadherin的细胞可失去接触抑制,恢复E-cadherin表达后,接触抑制能力可以恢复;阻断细胞间E-cadherin结合也可使增殖重新出现[6]。
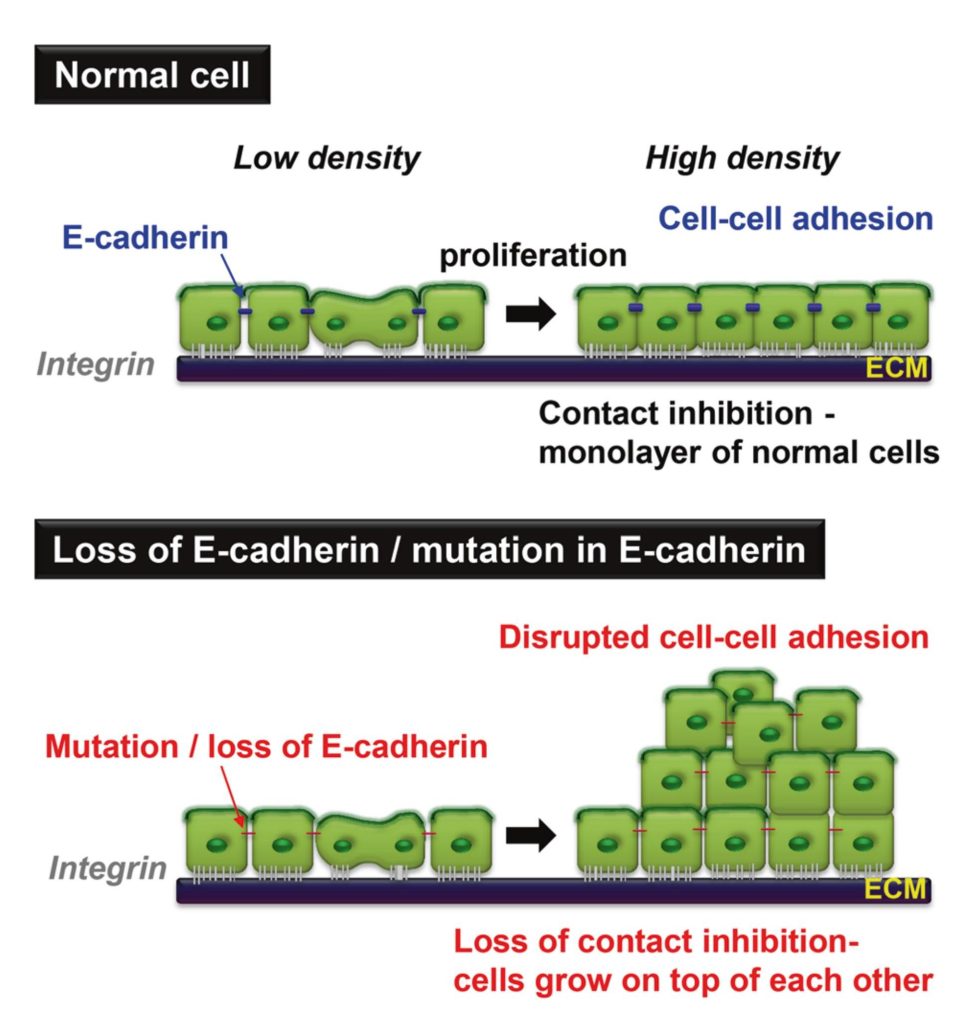
图3. E-cadherin介导的细胞接触与上皮细胞增殖抑制[6]。
这条调控链受到细胞形状、肌动蛋白状态、组织张力和基质黏附的共同影响。黏着连接张力还可能通过α-catenin、ajuba等分子影响LATS活性,因此E-cadherin连接在不同组织环境中可能产生不同的增殖和力学效应[4][6]。E-cadherin与β-catenin、Wnt信号之间也存在联系:E-cadherin可将部分β-catenin固定在细胞膜,减少其进入细胞核;E-cadherin减少后是否出现β-catenin核转位或Wnt靶基因激活,还取决于Wnt信号状态、β-catenin降解系统、蛋白酪氨酸磷酸化及其他协同事件[3][6]。
当CDH1功能下降时,上皮细胞极性、细胞迁移和组织结构也可能受到影响。Snail、Slug、Twist、ZEB1和ZEB2等转录调控因子能够抑制CDH1表达,参与上皮—间质转化相关过程;但转移细胞并不总是完全缺失E-cadherin,部分细胞可保留或重新表达E-cadherin,并以细胞团形式迁移。因此,E-cadherin表达量、细胞表面黏附活性、连接周转和组织力学状态需要结合具体模型解释[4][6]。
当CDH1发生导致E-cadherin表达缺失、蛋白截短或细胞表面功能下降的变异时,细胞间黏附和上皮结构维持能力可能受到影响;在特定家系和组织背景下,这种改变与弥漫型胃癌及小叶型乳腺癌的发生风险相关。该机制联系了CDH1变异、E-cadherin功能、细胞结构变化和遗传性肿瘤风险,也构成CDH1基因检测结果解释的生物学基础[3][7][8]。
CDH1基因检测在临床实践中的应用
CDH1基因检测的适用人群主要包括具有遗传性弥漫型胃癌或遗传性小叶型乳腺癌特征的个体和家系。50岁以前发生弥漫型胃癌、任何年龄发生弥漫型胃癌且具有特定高风险族群背景、弥漫型胃癌患者本人或一级亲属有唇裂或腭裂史,或同一家系中出现弥漫型胃癌和早发小叶型乳腺癌时,应考虑开展CDH1和CTNNA1检测。70岁以前发生双侧小叶型乳腺癌,也可成为遗传评估的线索。胃原位印戒细胞癌或印戒细胞Pagetoid spread等病理发现,提示需要进一步进行遗传风险评估[8]。
检测结果的解释需要区分致病或可能致病的胚系变异、VUS和阴性结果。CDH1变异应结合ACMG/AMP框架、CDH1专门解释标准、个人表型和家系资料进行判定;未经临床验证的体外实验或计算预测结果不单独作为错义变异致病性判定依据。VUS不用于无症状亲属的预测性检测决策;阴性结果则应结合检测范围、个人表型和家系背景解释[8]。
明确家系致病变异后,家系成员检测应围绕该变异开展。亲属检测结果可将家系成员区分为携带者和未携带者,并与其个人肿瘤史、病理类型和家族史结合解释。未检出明确致病变异的家系,仍应根据家族肿瘤谱和现有检测范围判断遗传风险[7][8]。
CDH1胚系致病性或可能致病性变异是遗传性弥漫型胃癌的重要遗传基础,也与遗传性小叶型乳腺癌风险相关。CDH1失活可破坏E-cadherin介导的细胞黏附和组织结构;在部分肿瘤发生过程中,野生型等位基因还可能发生体细胞失活,形成胚系易感与后续肿瘤细胞改变相结合的过程[3][7][8]。
CDH1相关风险受家系来源、家族史、胃癌终点和早期病灶纳入标准影响。IGCLC 2020年指南总结的早期高风险家系中,80岁以前胃癌风险估计可达男性约70%、女性约56%;在检测标准较宽、家系选择不同的研究中,风险估计明显降低。2024年北美多中心家系研究在高级别胃癌终点下估计80岁累积风险为男性10.3%、女性6.5%,女性乳腺癌累积风险为36.8%;若将无症状监测发现的早期印戒细胞病变纳入,胃癌风险估计会升高。因此,不同研究的风险数字需要结合研究人群和终点定义解释[7][8]。
家族史也会影响风险解释。2024年研究中,若携带者有3名胃癌一级亲属,模型估计到80岁的胃癌穿透率约为38%,高于不按家族史分层的总体估计。该结果提示,CDH1变异、家族共同遗传因素以及家族史所反映的其他风险因素可能共同影响最终表型,相关结果仍需在不同祖源和更多样化的队列中验证[7]。
《中国抗癌协会乳腺癌整合防筛专业委员会乳腺癌遗传咨询专家共识》指出,遗传风险评估应结合家族史、发病年龄、双侧乳腺癌以及乳腺癌与其他相关肿瘤的家族聚集情况;涉及CDH1时,应重点评估小叶型乳腺癌及其家族聚集情况。《中国家族遗传性肿瘤临床诊疗专家共识(2021年版)(3)——家族遗传性胃癌》列出的CDH1基因检测条件包括:个人在50岁前确诊弥漫型胃癌;同一家系中有2例胃癌,其中至少1例确诊为弥漫型胃癌;或同一家系中至少有1例弥漫型胃癌和1例70岁前确诊的小叶型乳腺癌[9][10][11]。
总结
CDH1最初被称为uvomorulin,经过基因定位、克隆和结构研究后,相关蛋白统一称为E-cadherin,其编码基因命名为CDH1。E-cadherin通过胞外同源黏附和胞质catenin复合体连接细胞骨架,参与细胞连接重塑、组织力学、接触抑制和细胞信号调控。CDH1胚系致病性或可能致病性变异的临床解释,需要结合变异类型、个人和家族表型、肿瘤病理类型、家系分离及研究人群进行判断;基因检测的重点不仅是发现变异,也包括对检测结果、家系成员和遗传风险的准确解释。
参考文献:
[1] Mansouri A, Spurr N, Goodfellow PN, Kemler R. Characterization and chromosomal localization of the gene encoding the human cell adhesion molecule uvomorulin. Differentiation, 1988, 38(1):67–71.
[2] Berx G, Staes K, Van Hengel J, Molemans F, Bussemakers MJG, van Bokhoven A, van Roy F. Cloning and characterization of the human invasion suppressor gene E-cadherin (CDH1). Genomics, 1995, 26(2):281–289.
[3] Guilford P, Hopkins J, Harraway J, McLeod M, McLeod N, Harawira P, Taite H, Scoular R, Miller A, Reeve AE. E-cadherin germline mutations in familial gastric cancer. Nature, 1998, 392(6674):402–405.
[4] Campàs O, Noordstra I, Yap AS. Adherens junctions as molecular regulators of emergent tissue mechanics. Nature Reviews Molecular Cell Biology, 2024, 25(4):252–269.
[5] Takeichi M. Dynamic contacts: rearranging adherens junctions to drive epithelial remodelling. Nature Reviews Molecular Cell Biology, 2014, 15:397–410.
[6] Mendonsa AM, Na TY, Gumbiner BM. E-cadherin in contact inhibition and cancer. Oncogene, 2018, 37(35):4769–4780.
[7] Ryan CE, Fasaye G-A, Gallanis AF, et al. Germline CDH1 Variants and Lifetime Cancer Risk. JAMA, 2024, 332(9):722–729.
[8] Blair VR, et al. Hereditary diffuse gastric cancer: updated clinical practice guidelines. The Lancet Oncology, 2020, 21(8):e386–e397.
[9] 中国抗癌协会乳腺癌整合防筛专业委员会. 乳腺癌遗传咨询专家共识. 中华乳腺病杂志(电子版), 2026, 20(4):197–206.
[10] 中国抗癌协会家族遗传性肿瘤专业委员会. 中国家族遗传性肿瘤临床诊疗专家共识(2021年版)(1)——家族遗传性乳腺癌. 中国肿瘤临床, 2021, 48(23):1189–1195.
[11] 中国抗癌协会家族遗传性肿瘤专业委员会. 中国家族遗传性肿瘤临床诊疗专家共识(2021年版)(3)——家族遗传性胃癌. 中国肿瘤临床, 2021, 48(24):1248–1252.
TargetCap® Core Exome Panel v3.0
TargetCap@ Core Exome Panel v3.0基于伯科高品质DNA探针合成技术开发,全流程国产制造,由~40万条探针组成,以GRCh38/hg38人类参考基因组设计,参考Refseq、CCDS、ClinVar等数据库,覆盖19,524个基因,目标区域为33.9Mb。
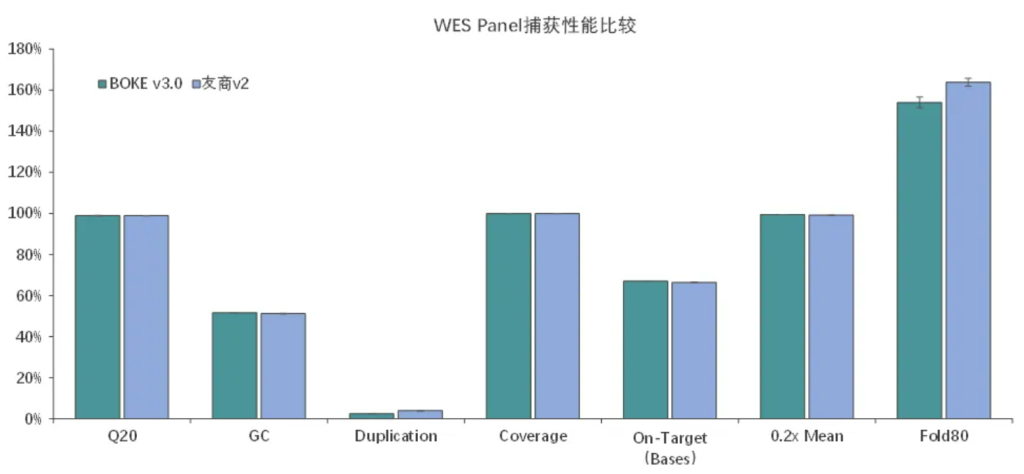
捕获性能比较
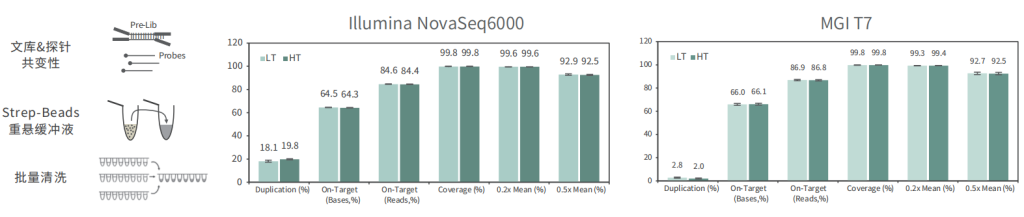
伯科全外芯片v3.0性能优异与国外友商同类型产品v2相当,中靶率、覆盖率、覆盖均一性等参数均达到国际领先水平。
适配高通量流程平台
批次稳定
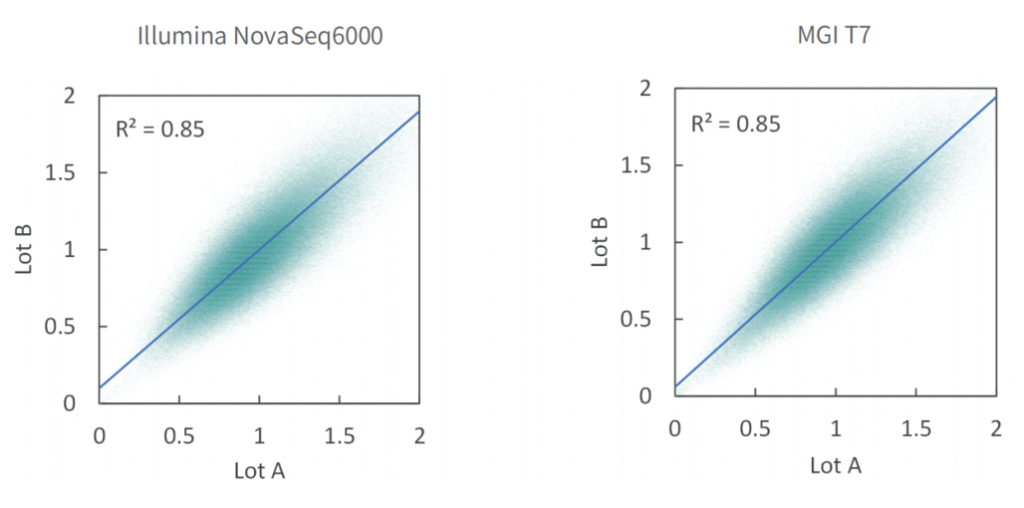
使用不同批次TargetCap® Core Exome Panel v3.0芯片对NA12878 gDNA进行捕获测序,结果显示,不同批次芯片在不同测序平台上均显示出优异的稳定性,不同位点的相对深度相关性高,批次稳定。
变异检测准确
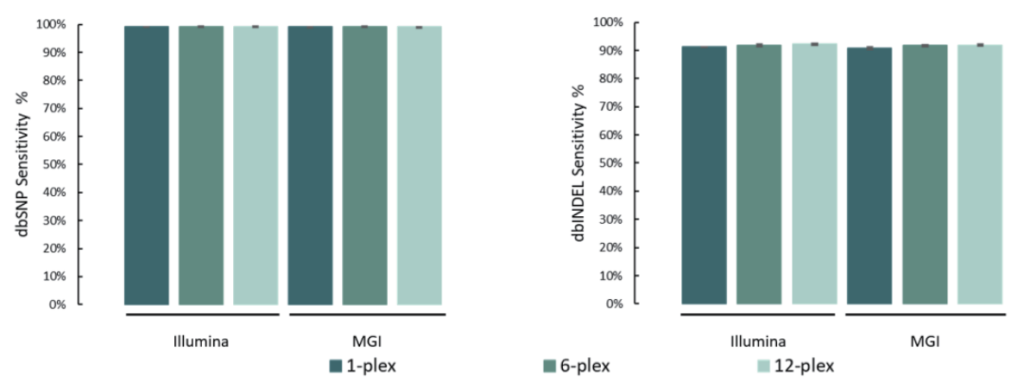
单核苷酸变异(SNV)和插入缺失 (INDEL)是基因组变异的常见形式,也是引起人类疾病的重要原因。
选取NA12878标准品,与预期SNV和INDEL变异进行比较。结果表明,在MGI与Illumina测序平台,SNP灵敏度为99.1%,INDEL灵敏度为91.6%。
添加线粒体模块临床样本表现
20例全血样本(S1#-S20#),采用1-4 Plex方式使用TargetCap® Core Exome Panel v3.0添加线粒体模块进行过夜杂交捕获;其中,S1#-S10#在Illumina NovaSeq X Plus平台测序, S11#-S20#在MGI MGISEQ-T7平台测序,均采用150PE模式测序。得到测序数据后,抽取8Gb数据进行生信分析。
两种测序平台的数据表现相近,平均深度分别为111x/115x (Illumina/MGI),中靶率优异均> 85%,覆盖均一性极佳(0.2X_MD≥99.3%);仅使用8Gb数据,高达98.5%的捕获区域达到了30X以上,99.5%的捕获区域达到20X以上,为临床样本检测提供了可靠的捕获数据。
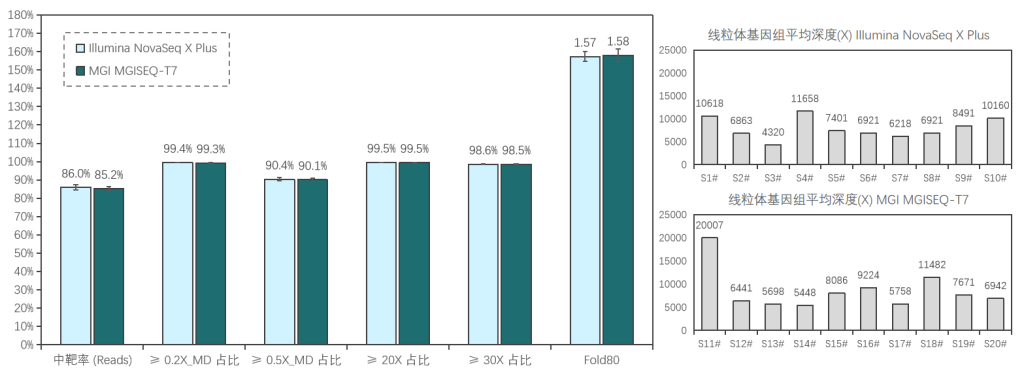
≥0.2X/0.5X_MD: Mean Depth,覆盖深度≥平均深度的0.2/0.5倍深度的区域占总区域的比例,用于表征覆盖均一性性能,越接近100%越好。
TargetCap® Core Exome Panel v7.0
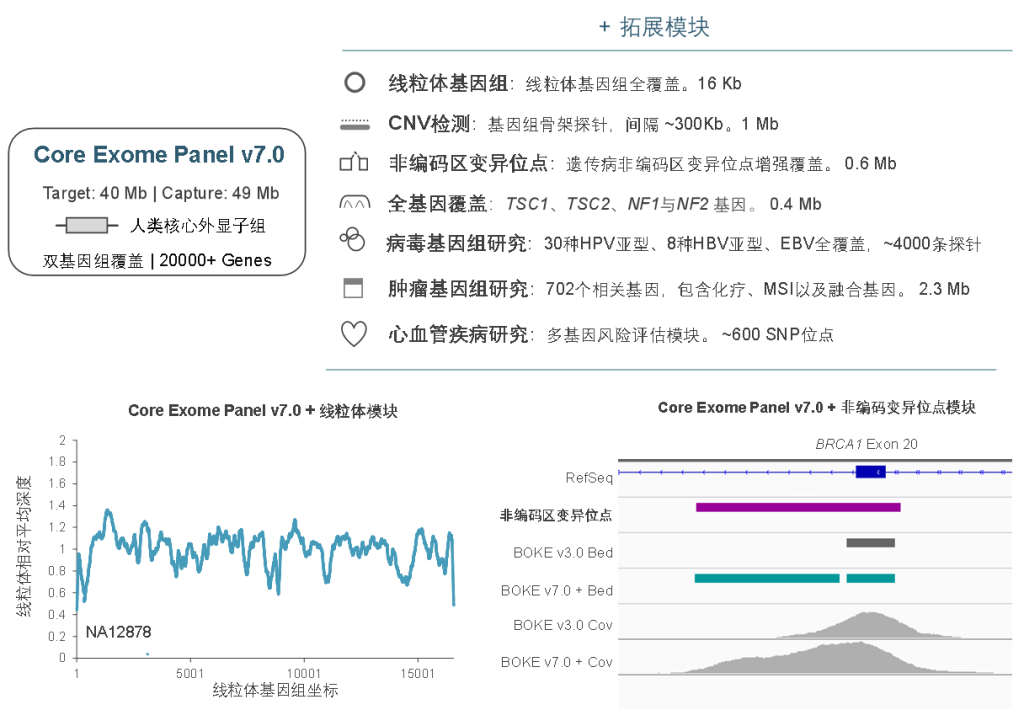
TargetCap® Core Exome Panel v7.0(下文简称BOKE v7.0),该WES Panel增强了基因组hg19传统研究区域的覆盖,兼顾 hg19 & hg38 双版本基因组,可以更好的保证临床科研与转化的延续性。目标区域和捕获区域大小分别为40Mb和49Mb,对 hg19 传统研究区域覆盖提升至99.7%(友商I-v1),hg38传统研究区域覆盖相近(友商A-v8)。同时,新添加数百个具有一定功能与表型的基因,总基因数量达到20000+。
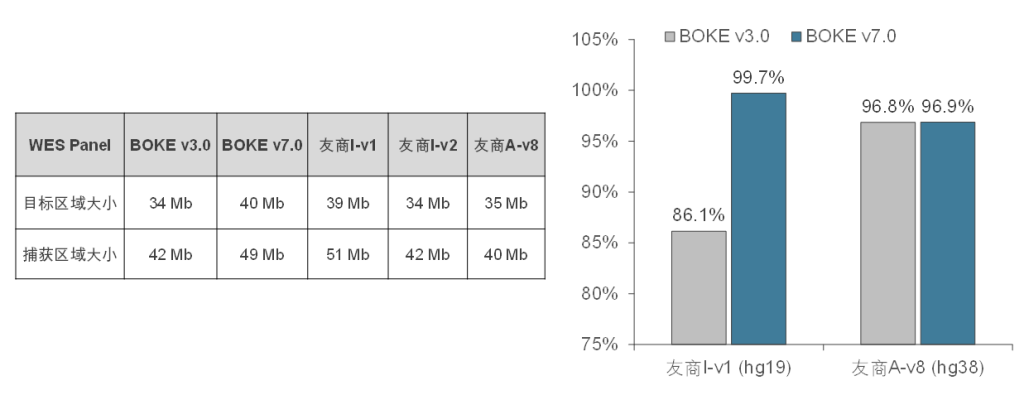
BOKE Core Exome Panel v7.0目标区域大小以及对不同友商产品目标区域的覆盖情况
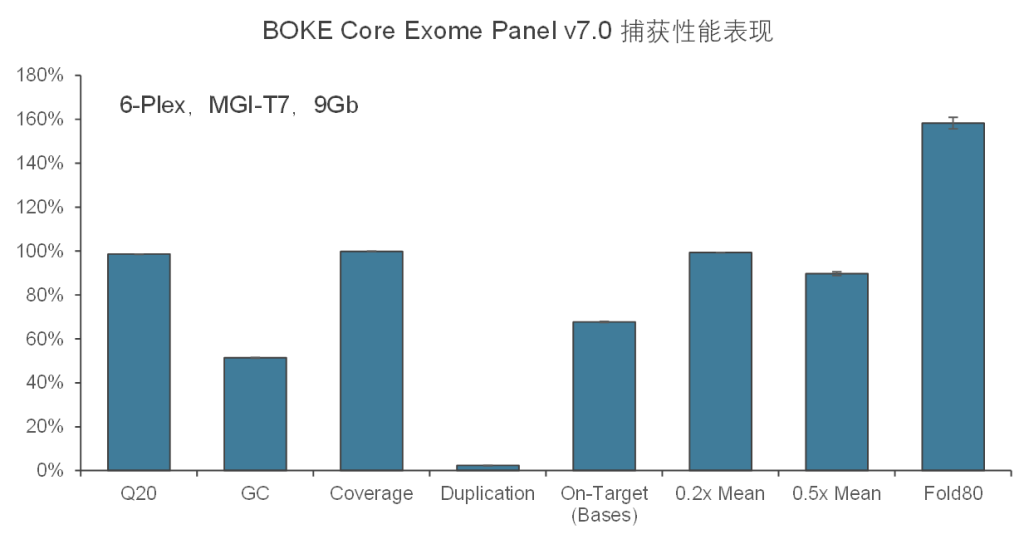
在捕获性能方面,TargetCap® Core Exome Panel v7.0依然表现优异,与TargetCap® Core Exome Panel v3.0表现相近。在测序9Gb条件下,平均深度达到110x左右,20x和30x以上区域占比分别为99.5%和98.5%,Fold 80为1.5-1.6之间,与国际领先产品数据表现相当。
同时,TargetCap® Core Exome Panel v7.0也可灵活的与拓展模块组合使用,满足不同场景的临床研究的需求及转化应用,包括线粒体、遗传病非编码区变异位点、单基因全覆盖、病毒基因组、肿瘤全景变异检测、重大疾病多基因风险评估模块等。此外,伯科公司自研自造的寡核苷酸合成平台可以快速响应个性化定制的需求,为人类基因组分子遗传学的研究与转化,提供更加全面高效的解决方案。