RET:从发现历程到受体信号调控与临床检测
- boke
- 2026-10-16
- 9:15 上午
RET基因
RET(ret proto-oncogene)位于10号染色体长臂10q11.21,基因组跨度约53 kb,含20个外显子。该基因编码跨膜受体酪氨酸激酶;GDNF等配体结合后可促进受体二聚化并激活下游信号,参与细胞分化、生长、迁移和存活,以及神经系统和神经嵴来源器官、组织发育。RET变异与先天性巨结肠(Hirschsprung病)和中枢性低通气综合征相关,也在肾缺如患者中被发现。截至目前有致病变异103个、可能致病变异48个;另有21个变异为致病/可能致病变异。
RET的发现与研究历程
1985年,研究者将人淋巴瘤DNA转入NIH3T3细胞,发现其中一种重排基因能够使受体细胞发生转化。该融合基因由RFP(现称TRIM27)的5′端与RET的3′端酪氨酸激酶区构成;“RET”名称源于“rearranged during transfection”。这一发现使RET重排与细胞转化联系起来,也开启了对RET致癌作用的研究[1][2][3]。
随后,RET被克隆并定位于10q11.2。1990年,研究者在甲状腺乳头状癌中发现RET/PTC重排。它与1985年发现的RFP–RET融合并非同一事件:RET/PTC由不同伙伴基因与RET激酶区融合形成。此后,遗传连锁研究将多发性内分泌腺瘤病2型(MEN2)定位到RET所在区域,后续研究证实胚系激活性RET变异与MEN2相关[1][2][3]。
研究者随后开始探索RET在正常发育中的作用。在Ret基因缺失的小鼠中,肾脏和肠神经系统发育出现异常,说明RET信号参与这两类组织的形成。1996年前后,研究进一步阐明GDNF及其共受体GFRα如何共同激活RET,逐步建立起对GDNF–GFRα–RET发育信号通路的认识[1][2][3]。
RET受体的结构与信号调控
RET是单次跨膜受体酪氨酸激酶。其胞外区包括四个钙黏蛋白样结构域和富半胱氨酸区,之后连接跨膜区及胞内酪氨酸激酶结构域。选择性剪接可形成RET9、RET43和RET51等亚型;不同亚型的C端尾部不同,可改变信号蛋白结合和下游信号输出[4][5][6]。
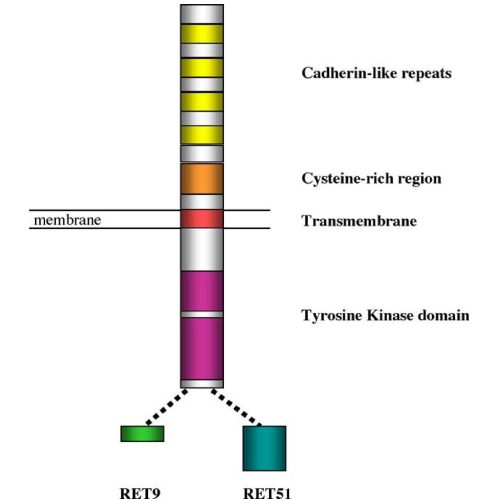
图1. RET蛋白结构示意图,展示胞外钙黏蛋白样重复序列、富半胱氨酸区、跨膜区及胞内酪氨酸激酶结构域,并标出RET9和RET51两种主要剪接异构体[1]。
GDNF、NRTN、ARTN和PSPN属于GDNF家族配体,通常分别与GFRα1、GFRα2、GFRα3和GFRα4结合,再与RET组成信号复合物;部分配体也可与其他GFRα亚型配对。RET本身不直接结合这些配体,而是由GFRα作为共受体连接配体与RET。GDF15则通过GFRAL与RET组成另一类信号复合物,参与摄食和体重调节[4][5][6]。结构研究已解析出由两个配体、两个GFRα和两个RET组成的2∶2∶2复合物,不同配体—共受体组合可形成几何构型不同的复合物。较新的结构研究提出一种RET激活模型:未结合配体时,RET处于预组装二聚体状态;配体结合后,受体通过构象重排促进激酶活化[4][6]。
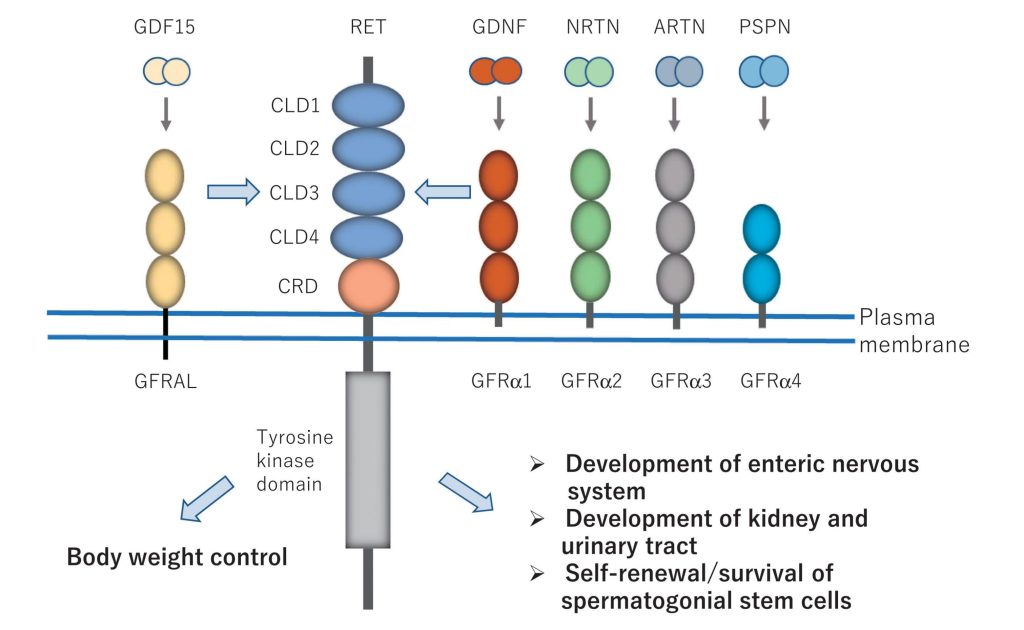
图2. GDNF家族配体经GFRα共受体激活RET;GDF15则经GFRAL与RET组成信号复合物[6]。
RET胞内酪氨酸位点磷酸化后,可募集不同衔接蛋白。Y1062是重要的多蛋白停靠位点,可连接SHC、FRS2等蛋白并启动RAS/MAPK和PI3K/AKT信号;Y1015可连接PLCγ。RET51特有的C端磷酸化位点Y1096可招募GRB2,进而连接持续性RAS–ERK信号。不同位点和受体亚型共同影响细胞存活、分化和迁移[4][5][6]。
RET信号的强弱和持续时间还受受体定位与膜转运影响。GFRα在细胞表面的可用性、RET的内吞与降解,以及RET与其他受体之间的相互作用,都可能改变信号持续时间。GFRα既可与RET位于同一细胞膜上参与信号,也可由邻近细胞提供,以跨细胞方式(trans)参与信号;其作用受细胞类型和发育阶段影响[7]。
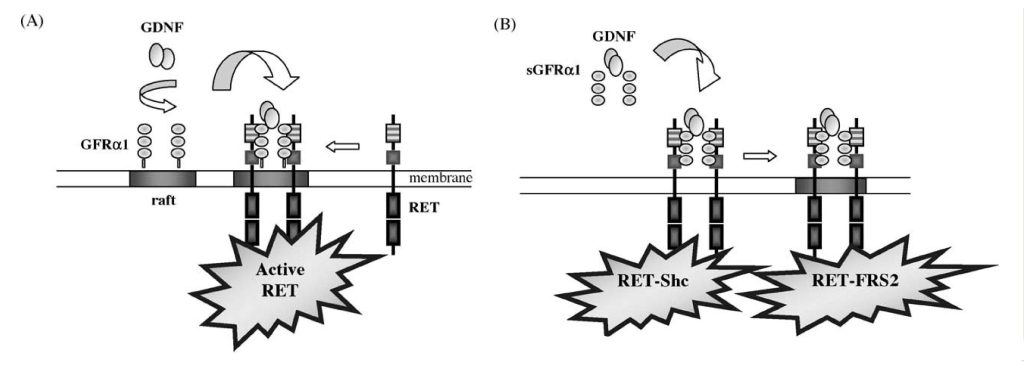
图3. 膜结合型与可溶型GFRα1介导的RET激活模式[1]。
(A) 在RET顺式激活模型中,位于脂筏内的GPI锚定GFRα1二聚体首先以高亲和力结合GDNF二聚体。随后,RET被招募至脂筏区室内的GDNF–GFRα复合物。(B) 在RET反式激活模型中,GDNF与可溶性GFRα1结合。GDNF–sGFRα复合物随后呈递给RET,从而触发激活。激活的RET优先与脂筏外的Shc结合,并在脂筏内与FRS2结合。
RET在发育与疾病相关变异中的作用
在发育过程中,GDNF–GFRα–RET信号参与肠神经嵴细胞的迁移、分化和存活,也参与输尿管芽生长与肾脏形成。相关研究还将RET信号与神经元发育、神经突生长及精原干细胞维持联系起来。GDF15–GFRAL–RET则构成另一条与能量摄入调节有关的生理信号轴[1][5][6]。
RET变异可使信号增强或减弱,其影响取决于变异所在区域及作用机制。MEN2相关激活性胚系变异多见于胞外富半胱氨酸区或激酶结构域:部分半胱氨酸替换会促使受体异常二聚化;M918T等激酶区变异则可增强激酶活性或改变底物识别。相较之下,先天性巨结肠相关变异可影响受体成熟、膜定位、激酶活性或衔接蛋白结合,使肠神经系统发育所需的RET信号减弱[1][2][3]。
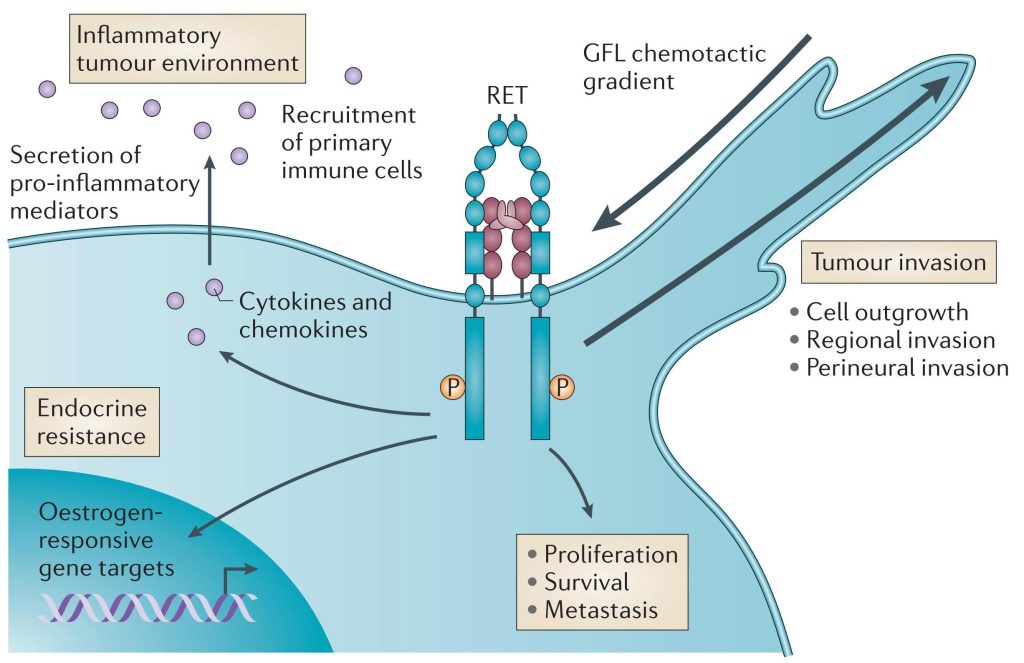
图4. 肿瘤微环境中的GFL–RET信号与肿瘤进展、侵袭及内分泌耐药[2]。
部分胞外半胱氨酸变异会同时产生两种影响:一方面促使受体组成性激活,另一方面降低受体成熟或到达细胞表面的比例。因此,少数此类变异与MEN2和先天性巨结肠两类表型均有关。RET/PTC等体细胞融合则将伙伴基因与RET激酶区连接,使信号持续活化,不再依赖正常配体刺激[1][2][3]。
RET基因检测在临床实践中的应用
胚系风险评估方面,《中国家族遗传性肿瘤临床诊疗专家共识(2021年版)(5)——家族遗传性甲状腺癌》根据RET变异位点对MEN2相关风险分层:M918T列为最高风险,C634和A883F列为高风险,部分胞外半胱氨酸位点列为中风险。检测方面,《甲状腺癌RET基因检测与临床应用专家共识(2021版)》建议所有甲状腺髓样癌患者接受RET点突变检测,并区分体细胞与胚系检测;胚系检测采用外周血,已知家族变异可用于直系亲属验证[9][10]。
《RET基因变异甲状腺癌诊疗中国专家共识(2024版)》建议所有初诊甲状腺髓样癌患者接受RET体细胞突变检测和胚系筛查;若检出胚系致病或可能致病变异,还建议对一级亲属开展胚系检测并提供遗传咨询[8]。
检测方法应与目标变异类型相匹配。《甲状腺癌RET基因检测与临床应用专家共识(2021版)》和《RET基因变异甲状腺癌诊疗中国专家共识(2024版)》均涉及RET点变异与融合/重排检测。NGS可分析多种变异;点变异还可采用ARMS-PCR或Sanger测序,融合/重排则可采用FISH或RT-PCR。DNA-NGS有助于检出点变异及不同融合伴侣,RNA-NGS有助于识别融合,但检测结果会受到RNA质量影响。RET融合检测中的RT-PCR通常针对已知融合产物或融合伴侣设计引物;FISH的适用范围也受到限制[8][10]。
肺癌RET融合检测方面,《中国非小细胞肺癌RET基因融合临床检测专家共识》建议在晚期肺腺癌(包括含腺癌成分的非小细胞肺癌)中检测RET融合,并讨论组织、细胞学及液体样本的选择。《晚期RET融合阳性非小细胞肺癌诊疗中国专家共识(2023版)》也建议晚期或转移性非小细胞肺癌初次基因检测纳入RET融合。两份共识均介绍DNA-NGS、RNA-NGS、RT-qPCR和FISH的适用情形,并指出融合伴侣、核酸质量以及探针或引物覆盖范围都会影响检测结果[11][12]。
液体活检的适用范围因检测场景而异。甲状腺癌方面,《甲状腺癌RET基因检测与临床应用专家共识(2021版)》仅在晚期且无法取得组织时将液体活检作为补充,并提示可能出现假阴性;《RET基因变异甲状腺癌诊疗中国专家共识(2024版)》则不建议以液体活检开展甲状腺癌分子检测。肺癌RET融合检测方面,组织或细胞学标本不足时可考虑液体样本,但阴性结果需结合样本敏感性限制解读[8][10][11]。
总结
RET研究从转染实验中的重排基因起步,逐步揭示其作为受体酪氨酸激酶的生理功能及信号调控。激活性点变异、功能降低变异和融合/重排可通过不同机制改变RET信号。临床检测需要区分胚系与体细胞、点变异与融合,并根据目标变异类型和样本选择方法;胚系检测结果还可用于家系风险识别与级联检测。
参考文献:
[1] Arighi E, Borrello MG, Sariola H. RET tyrosine kinase signaling in development and cancer. Cytokine & Growth Factor Reviews, 2005, 16(4-5):441-467.
[2] Mulligan LM. RET revisited: expanding the oncogenic portfolio. Nature Reviews Cancer, 2014, 14(3):173-186.
[3] Takahashi M. Four decades of the RET gene: From discovery to tumor-agnostic therapy. Journal of the Formosan Medical Association, 2025, 124(10):895-901.
[4] Zol-Hanlon M, McDonald NQ. RET receptor tyrosine kinase architecture, assemblies and activation. Endocrine-Related Cancer, 2026, 33(4):e250322.
[5] Kawai K, Takahashi M. Intracellular RET signaling pathways activated by GDNF. Cell and Tissue Research, 2020, 382(1):113-123.
[6] Takahashi M. RET receptor signaling: Function in development, metabolic disease, and cancer. Proceedings of the Japan Academy, Series B: Physical and Biological Sciences, 2022, 98(3):112-125.
[7] Donnelly CR, Pierchala BA. Plasma membrane localization of the GFL receptor components: a nexus for receptor crosstalk. Cell and Tissue Research, 2020, 382(1):57-64.
[8] 中国抗癌协会甲状腺癌专业委员会、中国抗癌协会头颈肿瘤专业委员会、中华医学会肿瘤学分会甲状腺肿瘤专业委员会. RET基因变异甲状腺癌诊疗中国专家共识(2024版). 中华普通外科杂志, 2024, 39(12):897-903.
[9] 中国抗癌协会家族遗传性肿瘤专业委员会. 中国家族遗传性肿瘤临床诊疗专家共识(2021年版)(5)——家族遗传性甲状腺癌. 中国肿瘤临床, 2022, 49(1):6-11.
[10] 广东省医学教育协会甲状腺专业委员会、广东省基层医药学会细胞病理与分子诊断专业委员会. 甲状腺癌RET基因检测与临床应用专家共识(2021版). 中华普通外科学文献(电子版), 2022, 16(1):1-8.
[11] 中国抗癌协会肿瘤病理专业委员会分子病理协作组、中华医学会病理学分会分子病理学组、国家病理质控中心. 中国非小细胞肺癌RET基因融合临床检测专家共识. 中华病理学杂志, 2021, 50(6):583-591.
[12] 中国抗癌协会肿瘤精准治疗专业委员会、中华医学会杂志社肺癌研究协作组、中国临床肿瘤学会非小细胞肺癌专家委员会. 晚期RET融合阳性非小细胞肺癌诊疗中国专家共识(2023版). 中华肿瘤杂志, 2023, 45(12):991-1002.
TargetCap® Core Exome Panel v3.0
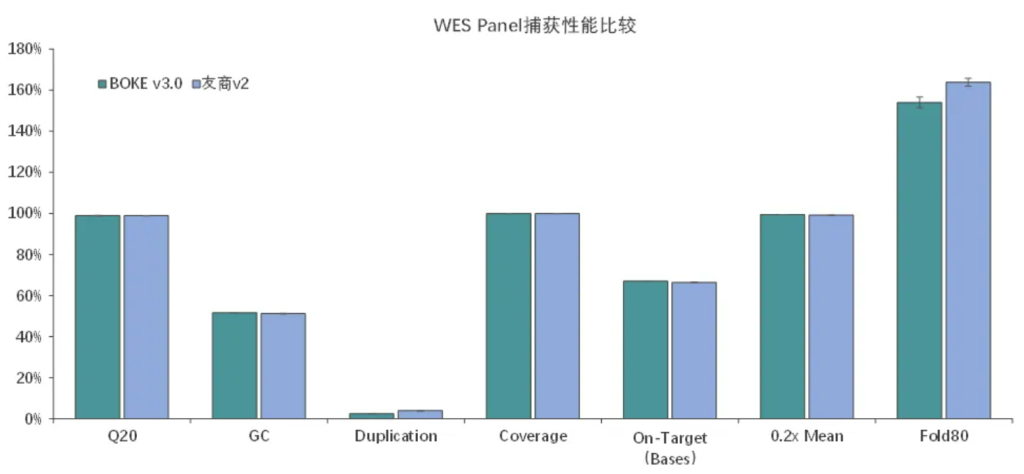
TargetCap@ Core Exome Panel v3.0基于伯科高品质DNA探针合成技术开发,全流程国产制造,由~40万条探针组成,以GRCh38/hg38人类参考基因组设计,参考Refseq、CCDS、ClinVar等数据库,覆盖19,524个基因,目标区域为33.9Mb。
捕获性能比较
伯科全外芯片v3.0性能优异与国外友商同类型产品v2相当,中靶率、覆盖率、覆盖均一性等参数均达到国际领先水平。
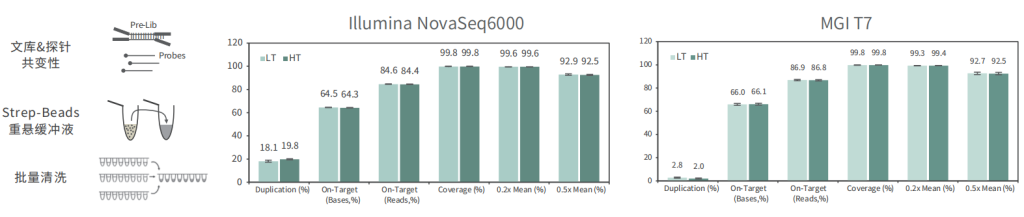
适配高通量流程平台
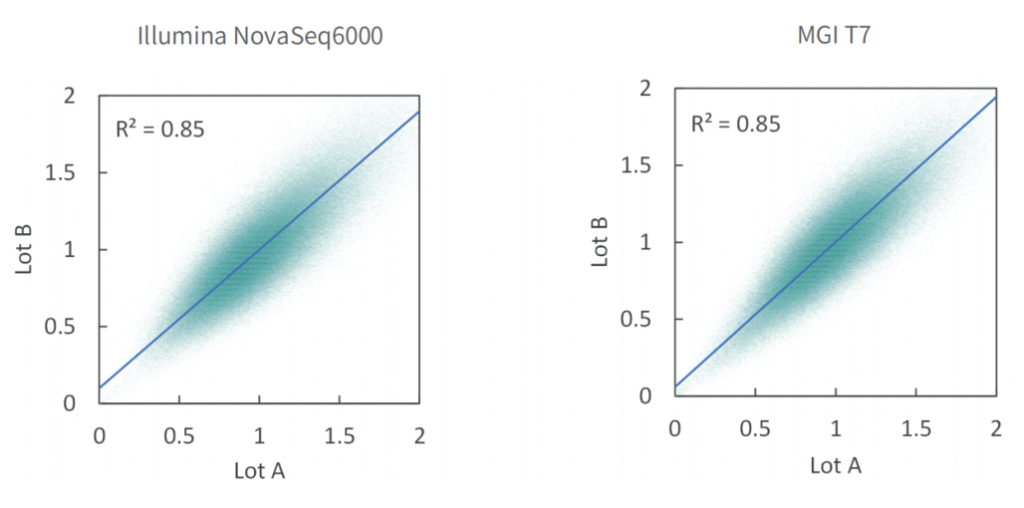
批次稳定
使用不同批次TargetCap® Core Exome Panel v3.0芯片对NA12878 gDNA进行捕获测序,结果显示,不同批次芯片在不同测序平台上均显示出优异的稳定性,不同位点的相对深度相关性高,批次稳定。
变异检测准确
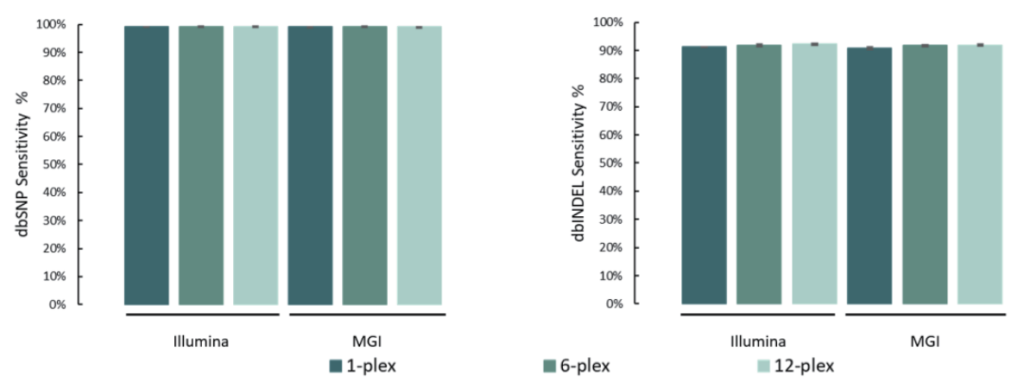
单核苷酸变异(SNV)和插入缺失 (INDEL)是基因组变异的常见形式,也是引起人类疾病的重要原因。
选取NA12878标准品,与预期SNV和INDEL变异进行比较。结果表明,在MGI与Illumina测序平台,SNP灵敏度为99.1%,INDEL灵敏度为91.6%。
添加线粒体模块临床样本表现
20例全血样本(S1#-S20#),采用1-4 Plex方式使用TargetCap® Core Exome Panel v3.0添加线粒体模块进行过夜杂交捕获;其中,S1#-S10#在Illumina NovaSeq X Plus平台测序, S11#-S20#在MGI MGISEQ-T7平台测序,均采用150PE模式测序。得到测序数据后,抽取8Gb数据进行生信分析。
两种测序平台的数据表现相近,平均深度分别为111x/115x (Illumina/MGI),中靶率优异均> 85%,覆盖均一性极佳(0.2X_MD≥99.3%);仅使用8Gb数据,高达98.5%的捕获区域达到了30X以上,99.5%的捕获区域达到20X以上,为临床样本检测提供了可靠的捕获数据。
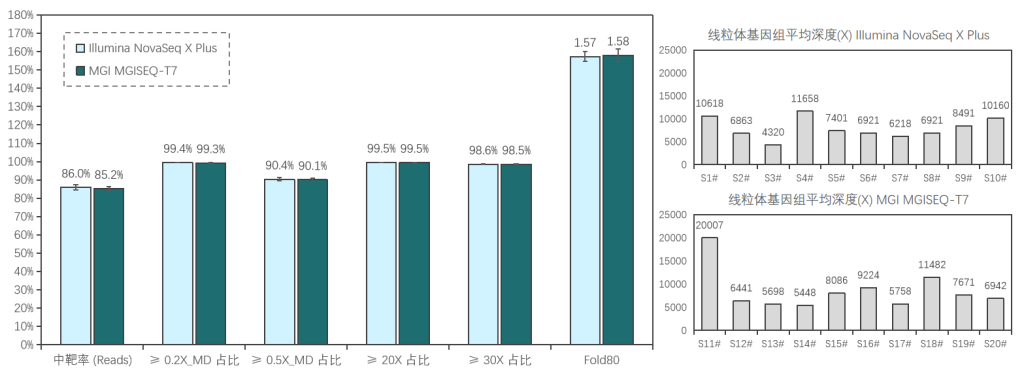
≥0.2X/0.5X_MD: Mean Depth,覆盖深度≥平均深度的0.2/0.5倍深度的区域占总区域的比例,用于表征覆盖均一性性能,越接近100%越好。
TargetCap® Core Exome Panel v7.0
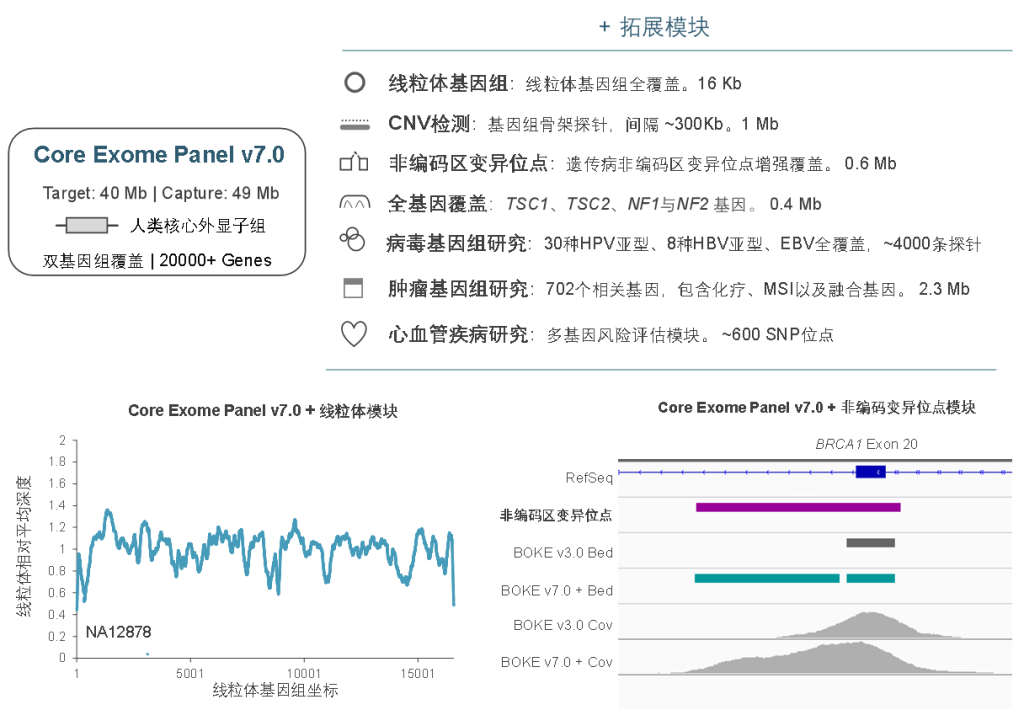
TargetCap® Core Exome Panel v7.0(下文简称BOKE v7.0),该WES Panel增强了基因组hg19传统研究区域的覆盖,兼顾 hg19 & hg38 双版本基因组,可以更好的保证临床科研与转化的延续性。目标区域和捕获区域大小分别为40Mb和49Mb,对 hg19 传统研究区域覆盖提升至99.7%(友商I-v1),hg38传统研究区域覆盖相近(友商A-v8)。同时,新添加数百个具有一定功能与表型的基因,总基因数量达到20000+。
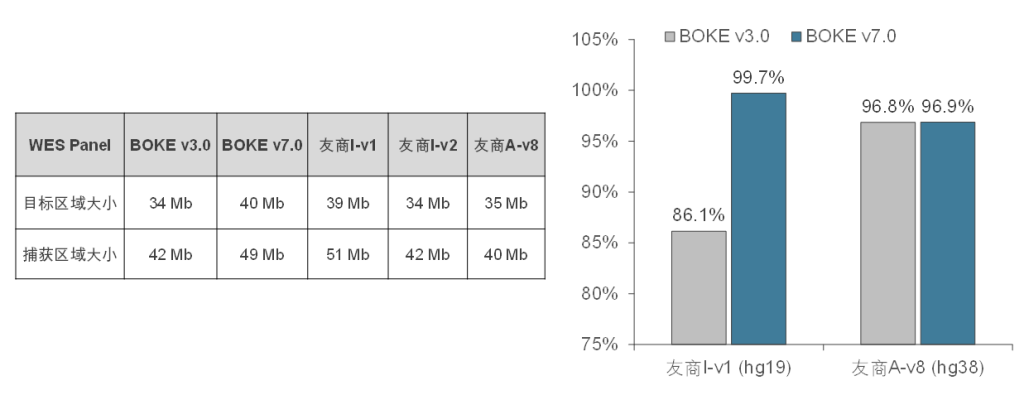
BOKE Core Exome Panel v7.0目标区域大小以及对不同友商产品目标区域的覆盖情况
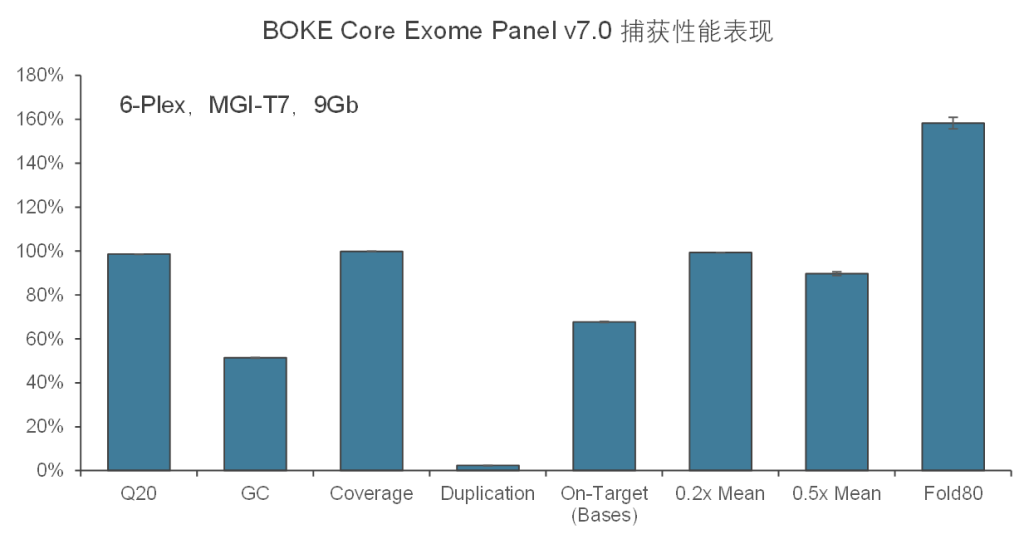
在捕获性能方面,TargetCap® Core Exome Panel v7.0依然表现优异,与TargetCap® Core Exome Panel v3.0表现相近。在测序9Gb条件下,平均深度达到110x左右,20x和30x以上区域占比分别为99.5%和98.5%,Fold 80为1.5-1.6之间,与国际领先产品数据表现相当。
同时,TargetCap® Core Exome Panel v7.0也可灵活的与拓展模块组合使用,满足不同场景的临床研究的需求及转化应用,包括线粒体、遗传病非编码区变异位点、单基因全覆盖、病毒基因组、肿瘤全景变异检测、重大疾病多基因风险评估模块等。此外,伯科公司自研自造的寡核苷酸合成平台可以快速响应个性化定制的需求,为人类基因组分子遗传学的研究与转化,提供更加全面高效的解决方案。