基因PTPN11:SHP-2自抑制开关与RTK-RAS-ERK信号调控
- boke
- 2026-11-09
- 10:23 上午
PTPN11基因
PTPN11(protein tyrosine phosphatase non-receptor type 11)位于12号染色体长臂12q24.13,基因组跨度约91 kb,含16个外显子。该基因编码蛋白酪氨酸磷酸酶SHP-2,属于蛋白酪氨酸磷酸酶家族,含有两个串联的Src同源2(Src homology 2,SH2)结构域,参与细胞生长、分化、有丝分裂、代谢调控、转录调控和细胞迁移等信号过程。PTPN11基因变异与Noonan综合征及急性髓系白血病相关。Pathogenic(致病)位点为140个,Likely pathogenic(可能致病)位点为60个;Pathogenic/Likely pathogenic(致病/可能致病)合并分类另有39个位点。
PTPN11基因的发现史
PTPN11基因的发现始于对其编码蛋白SHP-2的研究。20世纪90年代初,多个研究组独立鉴定出一类含有两个Src同源2(Src homology 2,SH2)结构域的胞质非受体蛋白酪氨酸磷酸酶,后被称为SHP-2。早期研究显示,SHP-2能够通过SH2结构域结合配体激活的受体酪氨酸激酶,提示其是受体信号向细胞内传递的重要调节蛋白;随后,研究者明确了SHP-2由PTPN11基因编码,并逐步解析了该基因及其蛋白结构域[1][2][3][4]。
2001年,PTPN11被锁定为12q24.1区域内的候选基因。研究者根据其在该区域的定位,以及SHP-2参与细胞内信号转导和发育过程的功能,将其作为候选基因;随后解析该基因的组织结构,并在与12号染色体标记连锁的两个家系中发现p.Ala72Ser和p.Gln79Arg错义变异。两种变异均与家系中的受累表型共分离,在未受累亲属和对照者中未检出;对22例散发病例或小家系个体进一步筛查后,11例检出PTPN11错义变异。这些结果将PTPN11从区域内的候选基因确立为与相关发育表型直接相关的致病基因[1]。
PTPN11基因被确认后,研究重点从基因定位和致病关联扩展到变异谱及其疾病来源。2005年的综述总结了PTPN11胚系错义变异与发育综合征的关系,以及体细胞错义变异在幼年型粒单核细胞白血病、骨髓增生异常综合征、急性髓系白血病和部分淋巴系肿瘤中的发现;不同来源的变异在结构区域和功能影响上并不完全相同。由此,PTPN11逐步被认识为同时参与发育调控和造血肿瘤发生的基因,胚系或体细胞来源、变异所在结构区域及其对SHP-2活性的影响,成为理解该基因相关表型的重要线索[2][4]。
SHP-2蛋白的结构与自抑制开关
对SHP-2结构的研究进一步解释了PTPN11变异如何影响信号传导。SHP-2由两个串联的N端SH2结构域、中央PTP催化结构域和C端尾部组成。两个SH2结构域能够识别含磷酸化酪氨酸的配体,使SHP-2定位到受体或细胞内信号复合物;C端尾部含有可发生酪氨酸磷酸化的位点及富含脯氨酸的区域,参与调节性相互作用。SHP-2的基础状态由结构域之间的相互作用维持,呈闭合的自抑制构象,而非持续开放的活性状态[2][3][4]。
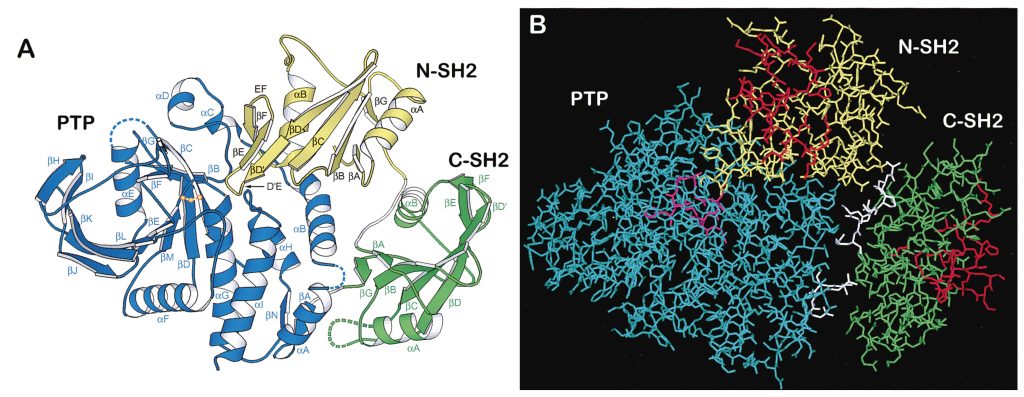
图1 SHP-2蛋白自抑制闭合构象的结构[3]。
图中黄色和绿色分别表示N端与C端SH2结构域,蓝色表示PTP催化结构域,白色表示结构域间连接区;N-SH2结构域的一个表面占据PTP结构域的活性位点,洋红色标示参与催化和磷酸盐结合的PTP签名基序。
1998年的晶体结构研究显示,在缺少磷酸化配体时,N-SH2结构域直接占据PTP催化结构域的活性位点,使底物难以进入;与此同时,PTP结构域对N-SH2结构域的作用还会改变其磷酸肽结合沟槽的构象。磷酸化配体与N-SH2结构域结合后,可削弱N-SH2与PTP结构域之间的抑制性接触,使SHP-2转变为开放构象并恢复催化活性。C-SH2结构域不直接完成催化激活,但能够提供结合特异性和配体结合能,帮助SHP-2进入合适的信号复合物[3]。
SHP-2蛋白在RTK-RAS-ERK信号中的调控作用
自抑制开关解除后,SHP-2通过受体信号复合物参与下游通路。受体酪氨酸激酶或细胞因子受体被激活后,SHP-2可通过SH2结构域识别磷酸化酪氨酸位点,并经由GAB1、GRB2等衔接蛋白被募集到信号复合物中。虽然SHP-2具有磷酸酶活性,但在许多受体酪氨酸激酶信号中,它发挥的是正向调节作用,能够促进RAS、RAF、MEK和ERK的连续激活。SHP-2在这一过程中的核心作用,是将受体信号接入RAS-MAPK级联通路[2][4][5]。
在这条通路中,RAS连接受体信号与RAF:GTP结合的RAS将RAF募集到细胞膜,RAF随后启动MEK和ERK的磷酸化级联,最终影响细胞增殖、分化、迁移和存活。PTPN11位于RAS/MAP激酶通路的上游,其变异可通过改变SHP-2的活化状态增强下游信号[4][5]。
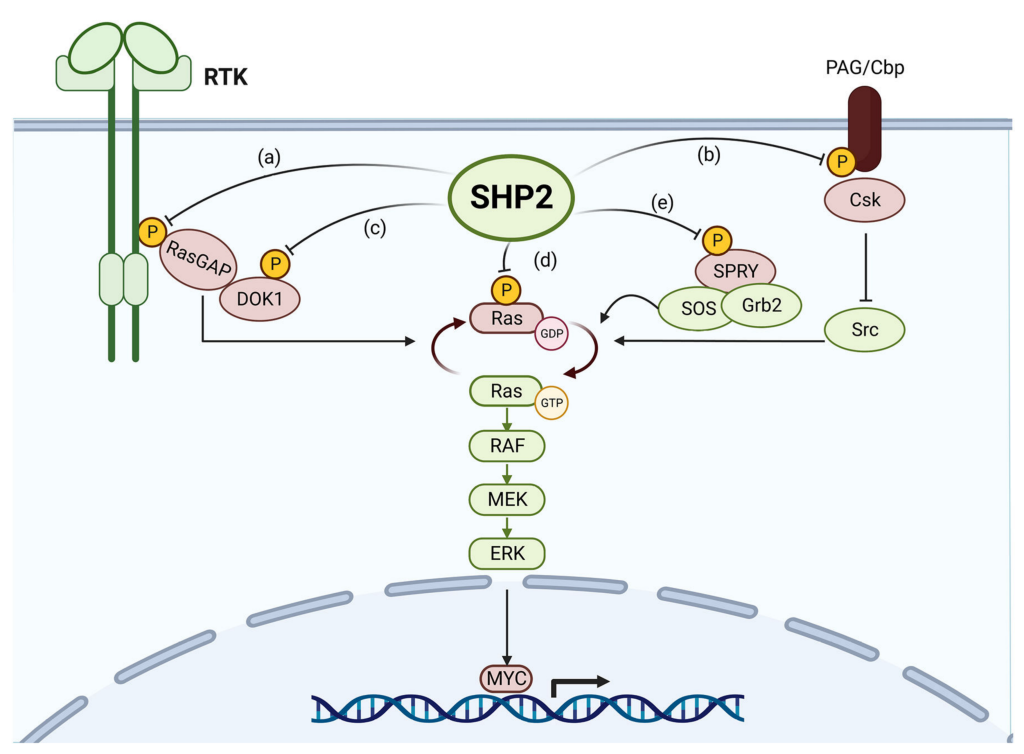
图2. SHP-2蛋白促进RTK-RAS-ERK信号的拟议机制[4]。
PTPN11基因变异对SHP-2蛋白构象平衡的影响
在结构开关和通路位置明确后,PTPN11变异的功能影响可以从构象平衡变化来理解。SHP-2参与发育和造血过程中的信号调控,PTPN11胚系变异与发育综合征相关,体细胞变异则可见于髓系肿瘤[2][4]。Noonan综合征相关PTPN11变异多位于N-SH2与PTP结构域的接触界面,或位于能够影响该界面稳定性的邻近位置。以p.Ala72Ser、p.Asp61Gly、p.Glu76Lys和p.Asn308Asp等变异为例,变异可能削弱闭合构象的稳定性,使SHP-2更容易由自抑制状态转为开放状态;这类改变通常表现为基础活性升高,而不是直接破坏PTP催化中心。2001年的原始研究和2005年的综述均将自抑制开关失衡及SHP-2信号增强视为Noonan综合征相关变异的重要机制[1][2][4]。
体细胞白血病相关变异与Noonan综合征胚系变异在结构区域上存在一定重叠,但具体氨基酸替换和对SHP-2活性的影响并不相同。变异引起的活性改变幅度及其所在的细胞背景,会影响发育表型或造血细胞增殖;因此,不能将所有PTPN11变异归为同一种功能结果[2][4]。
Noonan综合征伴多发性雀斑相关变异进一步说明,功能改变的方向不能只由基础酶活性判断。部分变异可降低基础磷酸酶活性,但同时削弱N-SH2与PTP结构域之间的抑制性相互作用,使SHP-2在受到磷酸化配体刺激时更容易被激活,仍可增强ERK信号。因此,解释PTPN11相关变异时,需要同时考虑闭合构象稳定性、配体依赖性激活和催化活性[2][4]。
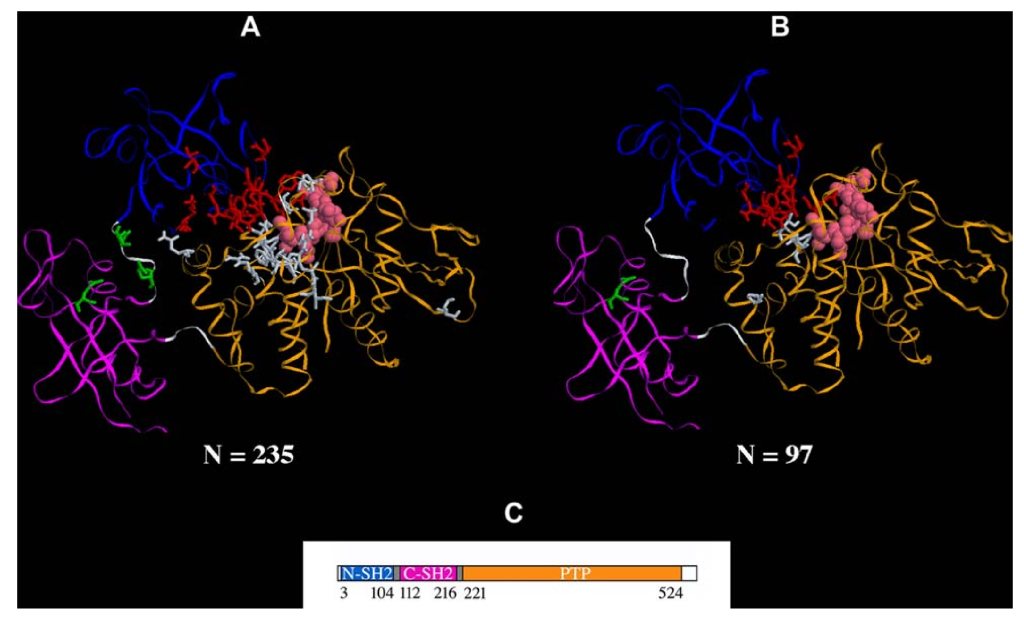
图3. PTPN11相关SHP-2变异在蛋白结构中的分布。A、B分别展示Noonan综合征及相关发育障碍的胚系变异、髓系和淋巴系恶性肿瘤的体细胞变异在SHP-2结构上的位置;C展示SHP-2的N-SH2、C-SH2和PTP结构域及氨基酸边界。该图用于说明变异位置与结构域及自抑制界面的关系,不代表所有变异具有相同的功能后果[2]。
PTPN11基因检测在临床实践中的应用
PTPN11基因检测的临床价值主要在于识别胚系致病变异、明确遗传学病因,并为家系风险评估提供依据。对于具有相关临床表现或家族史的个体,检出与表型相符的PTPN11致病或可能致病变异,可以支持或确认相关遗传诊断;未检出变异则不能排除检测范围以外的PTPN11变异、其他相关基因或尚未明确的遗传机制[6]。
胚系PTPN11变异的解释需要结合变异本身、受检者表型和既往证据。相关共识以检出PTPN11 p.Thr73Ile并伴有特定先天性心脏表型为例,说明变异分类不能脱离临床表现和文献证据。临床报告应区分致病或可能致病变异、临床意义未明变异和阴性结果;临床意义未明变异不能单独作为确定遗传病因或进行家系风险推断的依据[7]。
PTPN11相关胚系变异通常按常染色体显性遗传方式评估,既可表现为家族遗传,也可为新发变异。先证者检出致病或可能致病变异后,父母验证有助于判断变异来源,并据此评估其他家庭成员是否需要检测。家系成员的检测应围绕已知家族变异开展,不能根据先证者的临床诊断推定其他亲属均携带该变异[6][7]。
对已明确家族致病变异且有生育需求的家庭,PTPN11检测结果可用于遗传咨询和生育风险评估,并可在专业遗传咨询基础上讨论产前诊断。具体风险判断应以已确认的家族变异、父母检测结果和家系资料为基础,不能仅根据疾病名称或临床表型推定胎儿或其他亲属的携带状态[6][7]。
PTPN11胚系变异还与部分肿瘤遗传风险相关,尤其需要关注Noonan综合征背景下的髓系增殖性疾病风险。现有监测资料提示,特定PTPN11变异与相关髓系疾病风险有关,但目前不能仅凭PTPN11基因型准确预测疾病是否自行缓解或进展。因此,基因结果应作为风险分层和随访的重要参考,不能替代临床症状、体格检查及血液学评估;出现肝脾大、血液学异常或相关症状时,应由临床团队决定是否进一步检查[8]。
PTPN11相关肿瘤遗传风险评估需要区分胚系变异与肿瘤组织中的体细胞变异。胚系变异涉及个体本人及家系成员的遗传风险,体细胞变异主要用于理解肿瘤发生及肿瘤细胞信号异常,二者不能混用。临床应用中应将PTPN11变异解释、家系检测和肿瘤风险随访分别记录,并明确证据范围[2][8]。
总体而言,PTPN11临床检测的重点不是单纯扩大检测项目,而是准确识别和解释胚系变异,完成必要的家系验证,并将变异结果用于遗传咨询和相关肿瘤风险评估。
总结
PTPN11的研究由12q24.1区域定位起步,随后逐步明确了基因致病关联、SHP-2结构开关、RTK-RAS-ERK信号调控以及疾病相关变异的功能机制。SHP-2通过SH2结构域介导信号复合物定位,并依靠N-SH2与PTP结构域之间的构象转换调节催化活性;PTPN11变异可通过改变这一构象平衡增强下游RAS-MAPK信号。Noonan综合征相关胚系变异、Noonan综合征伴多发性雀斑相关变异和白血病相关体细胞变异,在结构区域、活性改变和临床后果上存在差异。临床检测应以表型和家系信息为基础,优先关注PTPN11,同时保留RAS-MAPK通路相关遗传病因的异质性;阳性结果需要结合变异解释和父母验证,阴性或临床意义未明结果则应结合检测范围和临床背景解读。
参考文献:
[1] Tartaglia M, Mehler EL, Goldberg R, et al. Mutations in PTPN11, encoding the protein tyrosine phosphatase SHP-2, cause Noonan syndrome. Nature Genetics, 2001, 29(4):465–468.
[2] Tartaglia M, Gelb BD. Germ-line and somatic PTPN11 mutations in human disease. European Journal of Medical Genetics, 2005, 48(2):81–96.
[3] Hof P, Pluskey S, Dhe-Paganon S, et al. Crystal structure of the tyrosine phosphatase SHP-2. Cell, 1998, 92(4):441–450.
[4] Scheiter A, Lu L-C, Gao LH, Feng G-S. Complex Roles of PTPN11/SHP2 in Carcinogenesis and Prospect of Targeting SHP2 in Cancer Therapy. Annual Review of Cancer Biology, 2024, 8(1):15–33.
[5] Jeon H, Tkacik E, Eck MJ. Signaling from RAS to RAF: The Molecules and Their Mechanisms. Annual Review of Biochemistry, 2024, 93:289–316.
[6] 中华医学会医学遗传学分会遗传病临床实践指南撰写组. Noonan综合征的临床实践指南. 中华医学遗传学杂志, 2020, 37(3):324–328.
[7] 中华医学会儿科学分会心血管学组,中华儿科杂志编辑委员会. 儿童先天性心脏病遗传学检测与临床应用专家共识(2025). 中华儿科杂志, 2025, 63(2):138–147.
[8] Perrino MR, Das A, Scollon SR, et al. Update on Pediatric Cancer Surveillance Recommendations for Patients with Neurofibromatosis Type 1, Noonan Syndrome, CBL Syndrome, Costello Syndrome, and Related RASopathies. Clinical Cancer Research, 2024, 30(21):4834–4843.
TargetCap® Core Exome Panel v3.0
TargetCap@ Core Exome Panel v3.0基于伯科高品质DNA探针合成技术开发,全流程国产制造,由~40万条探针组成,以GRCh38/hg38人类参考基因组设计,参考Refseq、CCDS、ClinVar等数据库,覆盖19,524个基因,目标区域为33.9Mb。
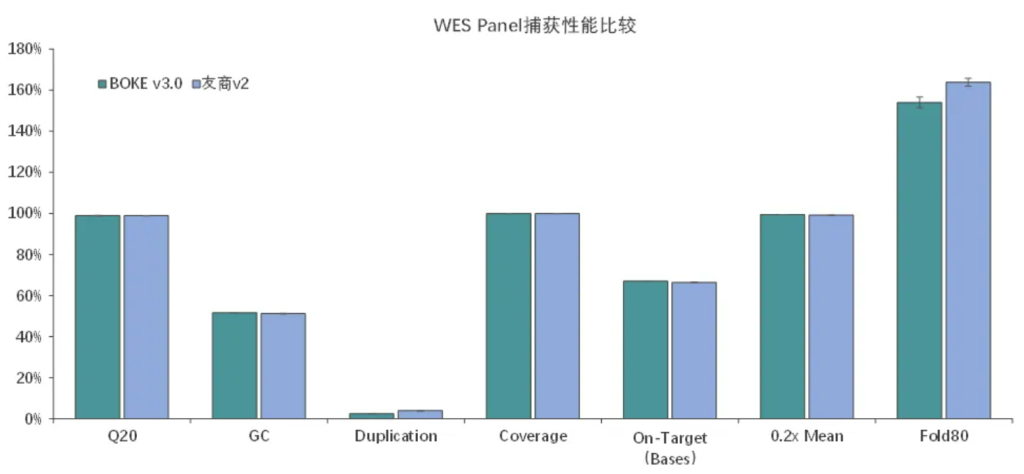
捕获性能比较
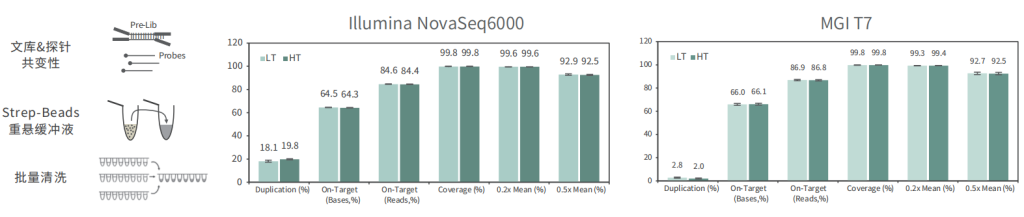
伯科全外芯片v3.0性能优异与国外友商同类型产品v2相当,中靶率、覆盖率、覆盖均一性等参数均达到国际领先水平。
适配高通量流程平台
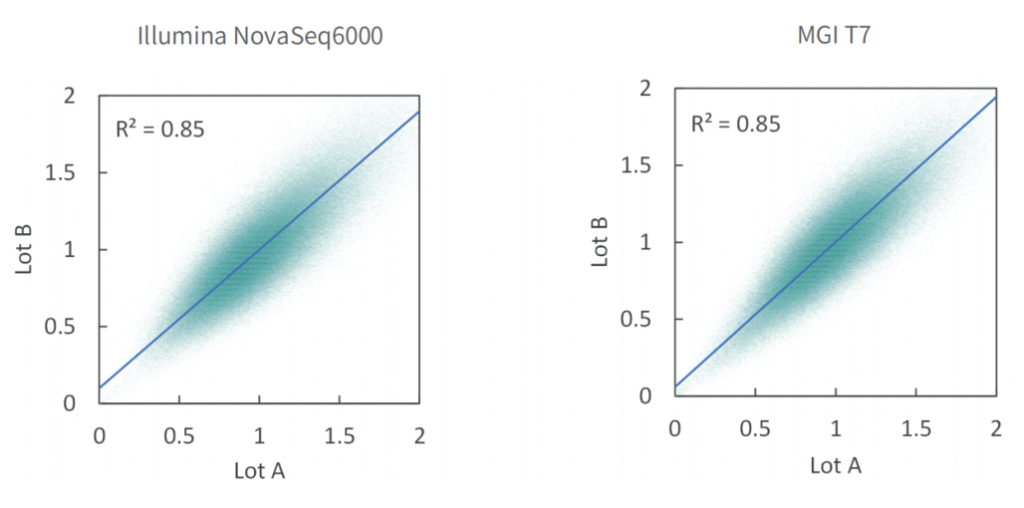
批次稳定
使用不同批次TargetCap® Core Exome Panel v3.0芯片对NA12878 gDNA进行捕获测序,结果显示,不同批次芯片在不同测序平台上均显示出优异的稳定性,不同位点的相对深度相关性高,批次稳定。
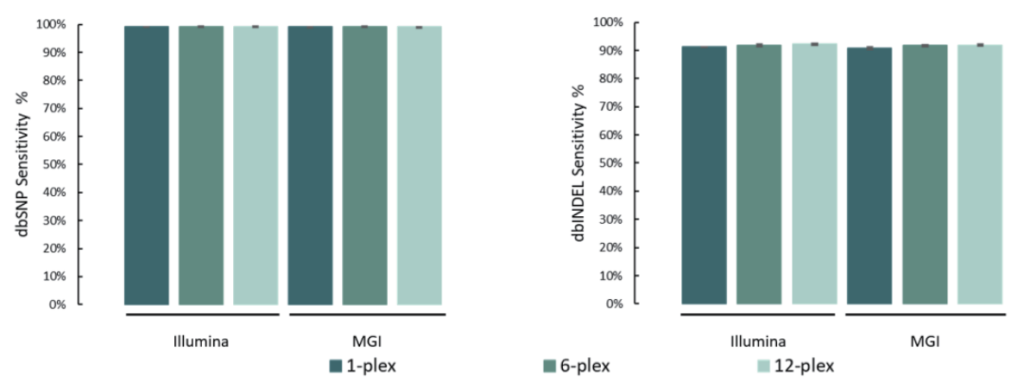
变异检测准确
单核苷酸变异(SNV)和插入缺失 (INDEL)是基因组变异的常见形式,也是引起人类疾病的重要原因。
选取NA12878标准品,与预期SNV和INDEL变异进行比较。结果表明,在MGI与Illumina测序平台,SNP灵敏度为99.1%,INDEL灵敏度为91.6%。
添加线粒体模块临床样本表现
20例全血样本(S1#-S20#),采用1-4 Plex方式使用TargetCap® Core Exome Panel v3.0添加线粒体模块进行过夜杂交捕获;其中,S1#-S10#在Illumina NovaSeq X Plus平台测序, S11#-S20#在MGI MGISEQ-T7平台测序,均采用150PE模式测序。得到测序数据后,抽取8Gb数据进行生信分析。
两种测序平台的数据表现相近,平均深度分别为111x/115x (Illumina/MGI),中靶率优异均> 85%,覆盖均一性极佳(0.2X_MD≥99.3%);仅使用8Gb数据,高达98.5%的捕获区域达到了30X以上,99.5%的捕获区域达到20X以上,为临床样本检测提供了可靠的捕获数据。
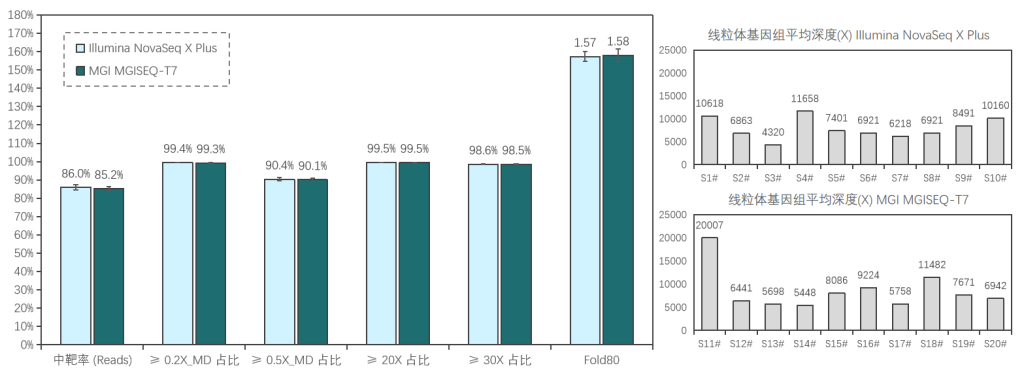
≥0.2X/0.5X_MD: Mean Depth,覆盖深度≥平均深度的0.2/0.5倍深度的区域占总区域的比例,用于表征覆盖均一性性能,越接近100%越好。
TargetCap® Core Exome Panel v7.0
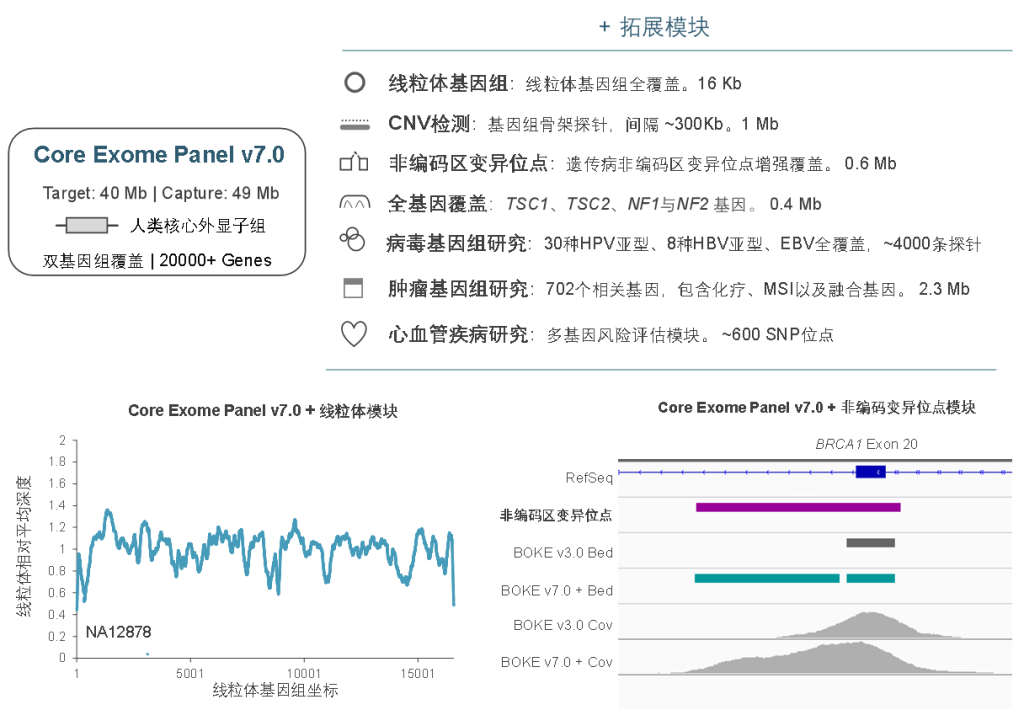
TargetCap® Core Exome Panel v7.0(下文简称BOKE v7.0),该WES Panel增强了基因组hg19传统研究区域的覆盖,兼顾 hg19 & hg38 双版本基因组,可以更好的保证临床科研与转化的延续性。目标区域和捕获区域大小分别为40Mb和49Mb,对 hg19 传统研究区域覆盖提升至99.7%(友商I-v1),hg38传统研究区域覆盖相近(友商A-v8)。同时,新添加数百个具有一定功能与表型的基因,总基因数量达到20000+。
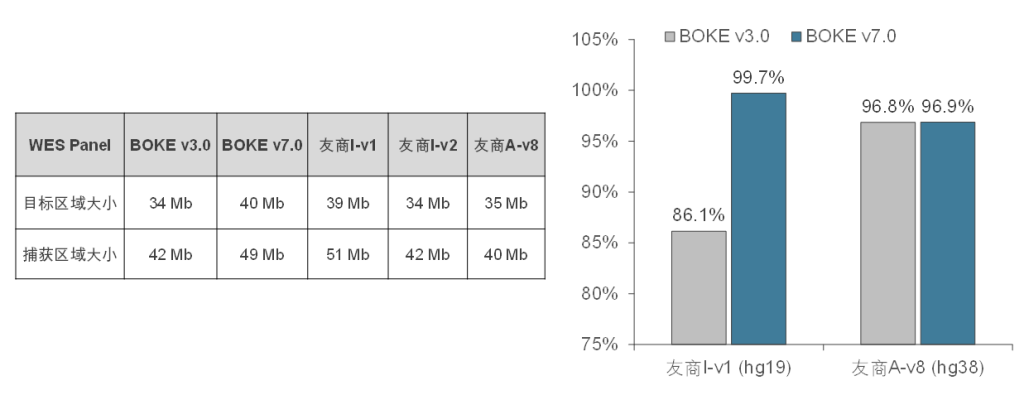
BOKE Core Exome Panel v7.0目标区域大小以及对不同友商产品目标区域的覆盖情况
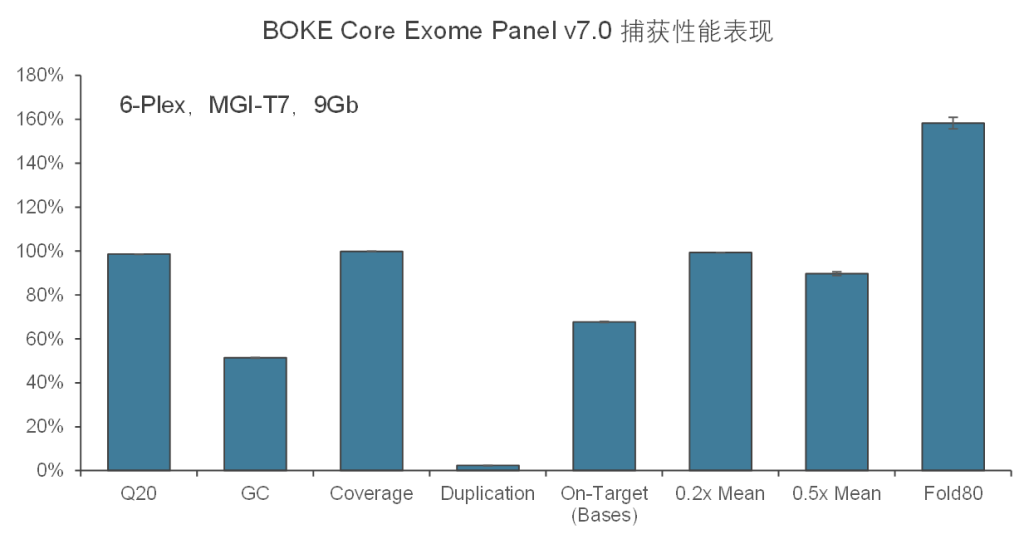
在捕获性能方面,TargetCap® Core Exome Panel v7.0依然表现优异,与TargetCap® Core Exome Panel v3.0表现相近。在测序9Gb条件下,平均深度达到110x左右,20x和30x以上区域占比分别为99.5%和98.5%,Fold 80为1.5-1.6之间,与国际领先产品数据表现相当。
同时,TargetCap® Core Exome Panel v7.0也可灵活的与拓展模块组合使用,满足不同场景的临床研究的需求及转化应用,包括线粒体、遗传病非编码区变异位点、单基因全覆盖、病毒基因组、肿瘤全景变异检测、重大疾病多基因风险评估模块等。此外,伯科公司自研自造的寡核苷酸合成平台可以快速响应个性化定制的需求,为人类基因组分子遗传学的研究与转化,提供更加全面高效的解决方案。