NF1:神经纤维蛋白的作用机制与遗传检测
- boke
- 2026-10-23
- 9:29 上午
NF1基因
NF1(neurofibromin 1)位于17号染色体长臂17q11.2,基因跨度约282.7 kb,含58个外显子;其编码神经纤维蛋白,参与负向调节RAS信号转导通路。NF1变异与1型神经纤维瘤病、幼年型粒-单核细胞白血病及Watson综合征相关。Pathogenic(致病)分类的变异位点4223个,Likely pathogenic(可能致病)分类的变异位点460个,Pathogenic/Likely pathogenic(致病/可能致病)合并分类的变异位点598个。
NF1基因的发现与早期认识
1882年,von Recklinghausen发表了后来归入1型神经纤维瘤病的首个公开病例报告[1]。NF1基因是1型神经纤维瘤病的致病基因,其定位始于20世纪80年代的家系连锁分析:遗传位点先被定位至17号染色体长臂,患者染色体易位和缺失又将候选区域缩小至17q11.2[2]。1990年,Collins和White分别领导的研究组通过定位克隆鉴定出NF1基因;患者中发现的染色体缺失和序列变异进一步支持NF1基因的致病作用[2][3]。早期文献曾将NF1基因组跨度估计为超过350 kb,并记载其转录本约11–13 kb,编码由2,818个氨基酸组成的神经纤维蛋白[2]。随后,研究者在神经纤维蛋白中发现与RAS-GAP催化结构域同源的区域,并将其称为GAP相关结构域(GRD);功能研究进一步证实,GRD可促进RAS-GTP水解,从而揭示神经纤维蛋白负向调节RAS信号的分子基础[2][3]。
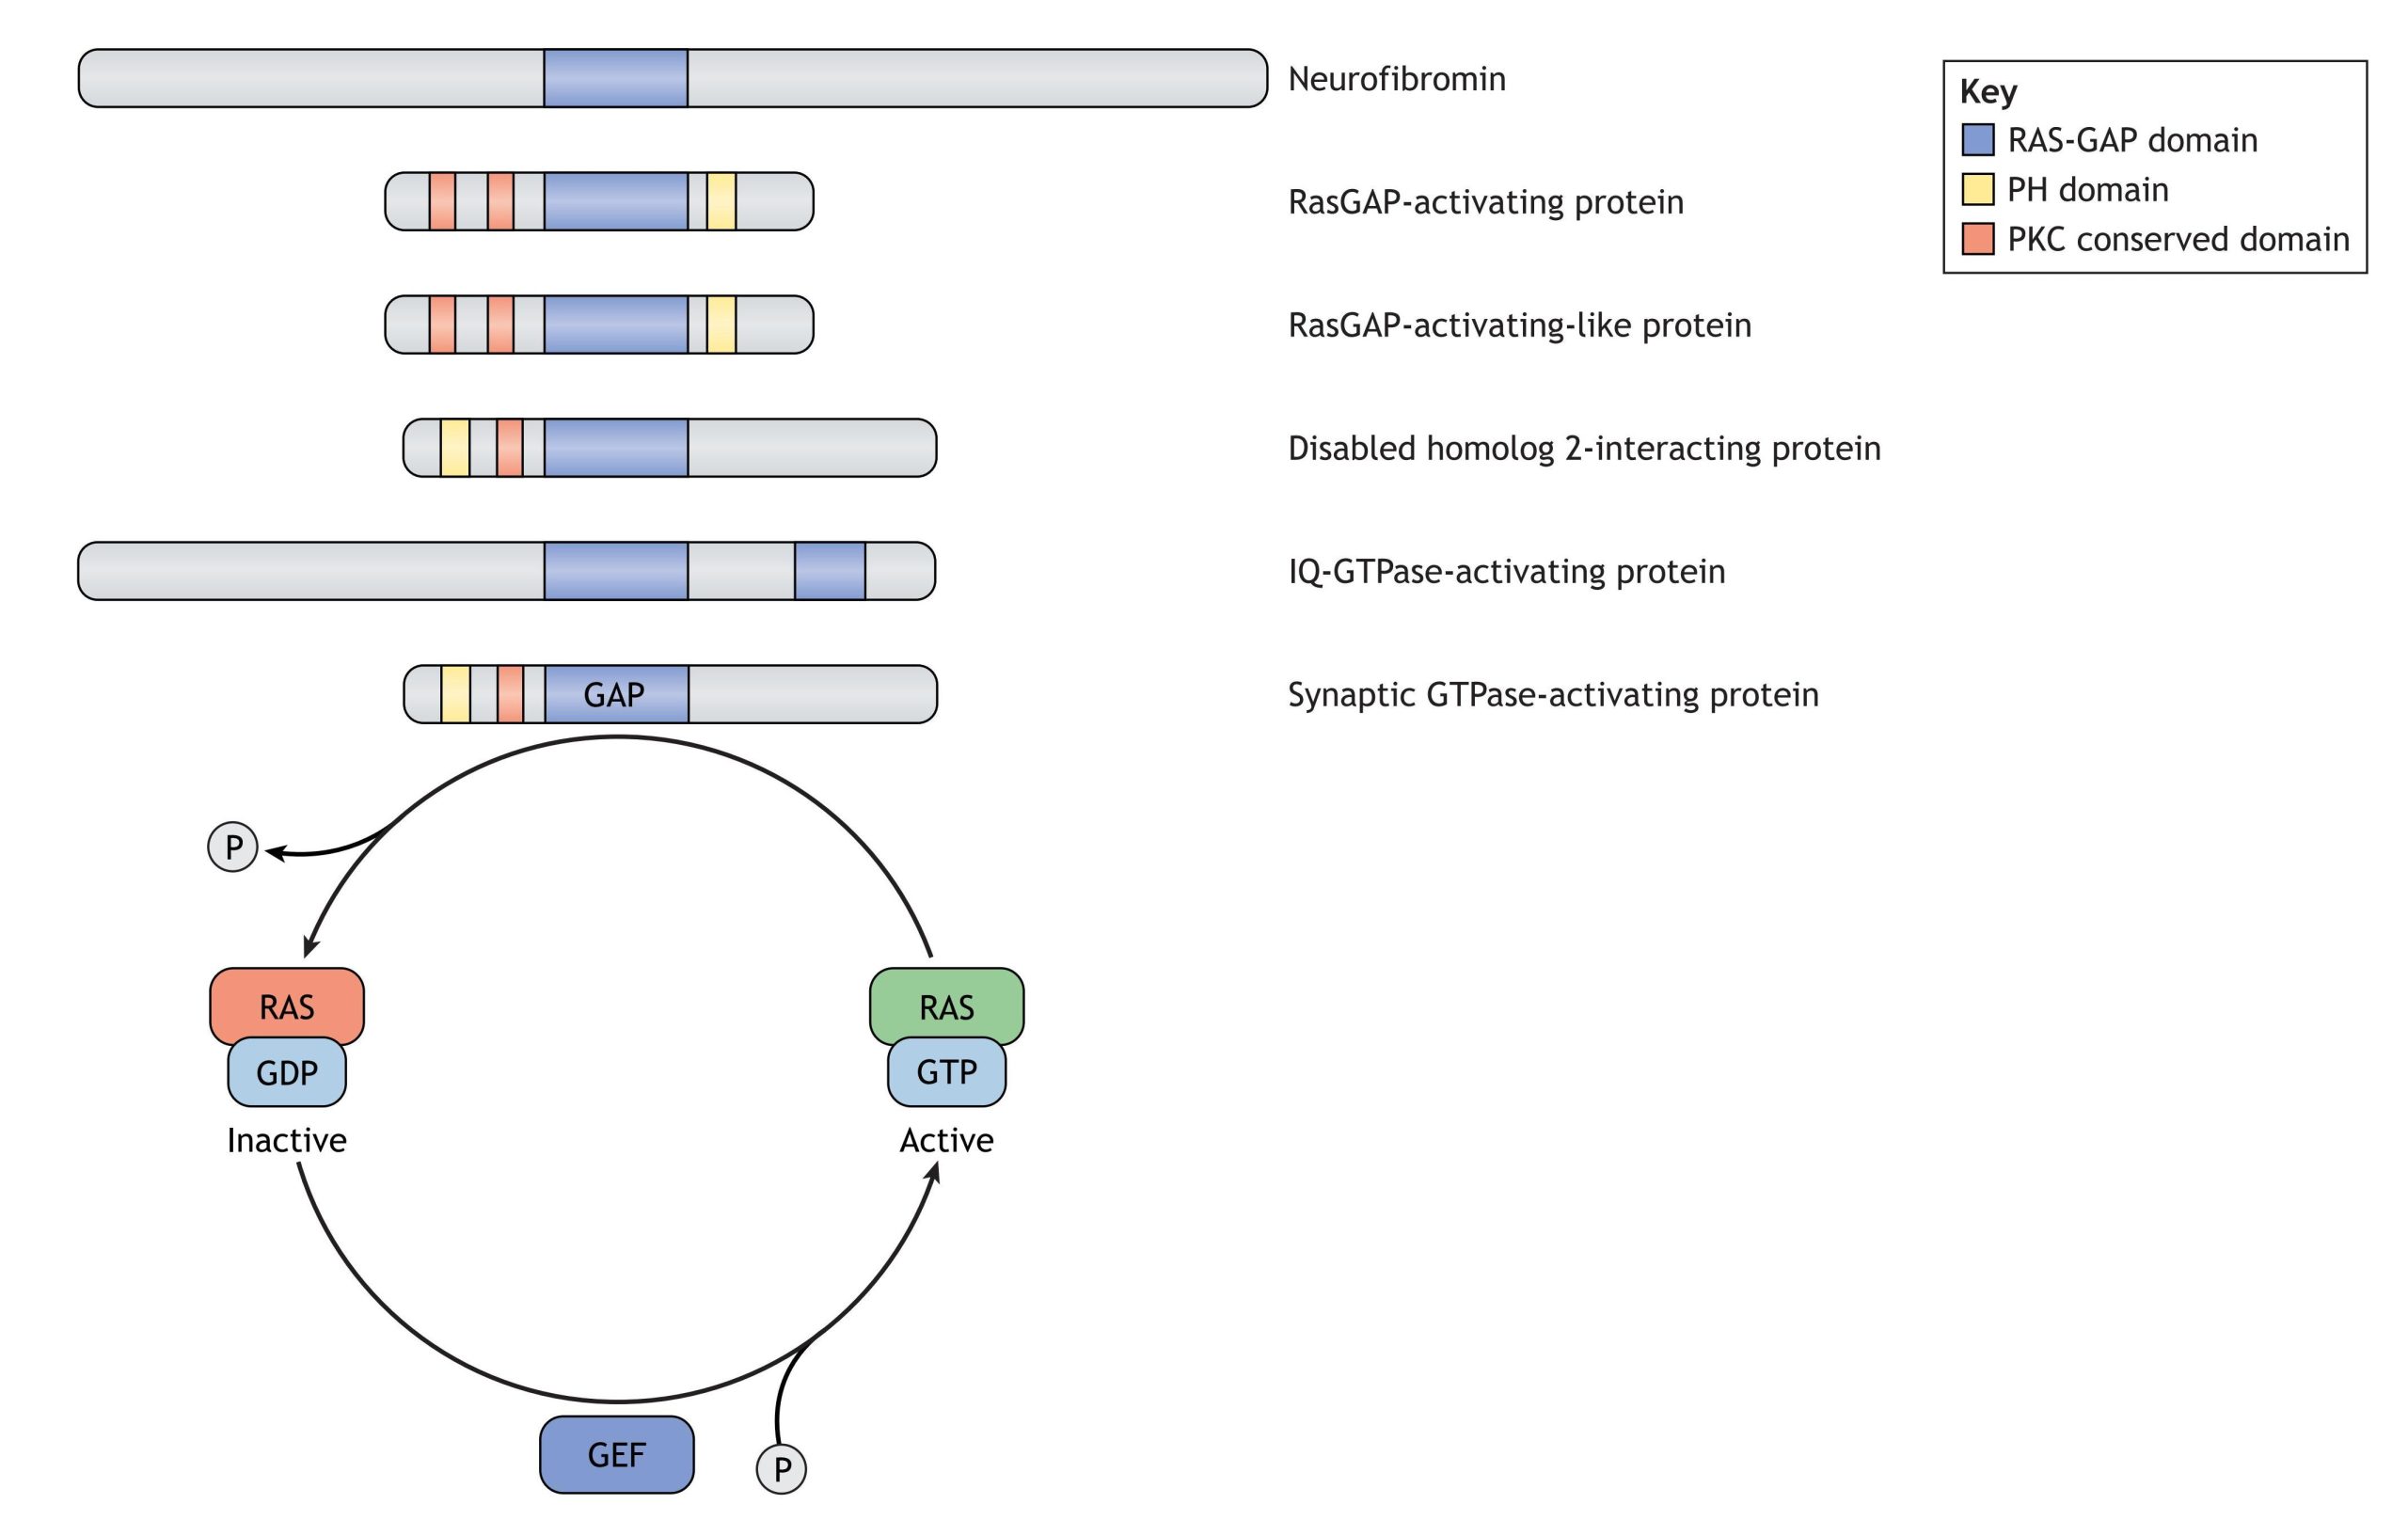
图1. 神经纤维蛋白及相关RAS-GAP蛋白结构域与RAS活性转换示意图[3]。
神经纤维蛋白的结构与作用机制
神经纤维蛋白对RAS的负向调节主要由中央的RAS-GAP相关结构域(GRD)介导。GRD约占其蛋白编码序列的10%,可加速RAS结合的GTP水解,使RAS从GTP结合的活化状态转为GDP结合状态;与之相对,鸟苷酸交换因子(GEF)促使RAS由GDP结合态转向GTP结合态[3][4]。因此,NF1功能缺失会减弱对RAS信号的负调控,使RAS活性升高,并增强下游RAF–MEK–ERK、PI3K–AKT–mTOR及Ral信号[3][4][5]。除HRAS、NRAS和KRAS外,神经纤维蛋白可能还调节RRAS、MRAS等RAS相关蛋白[3]。
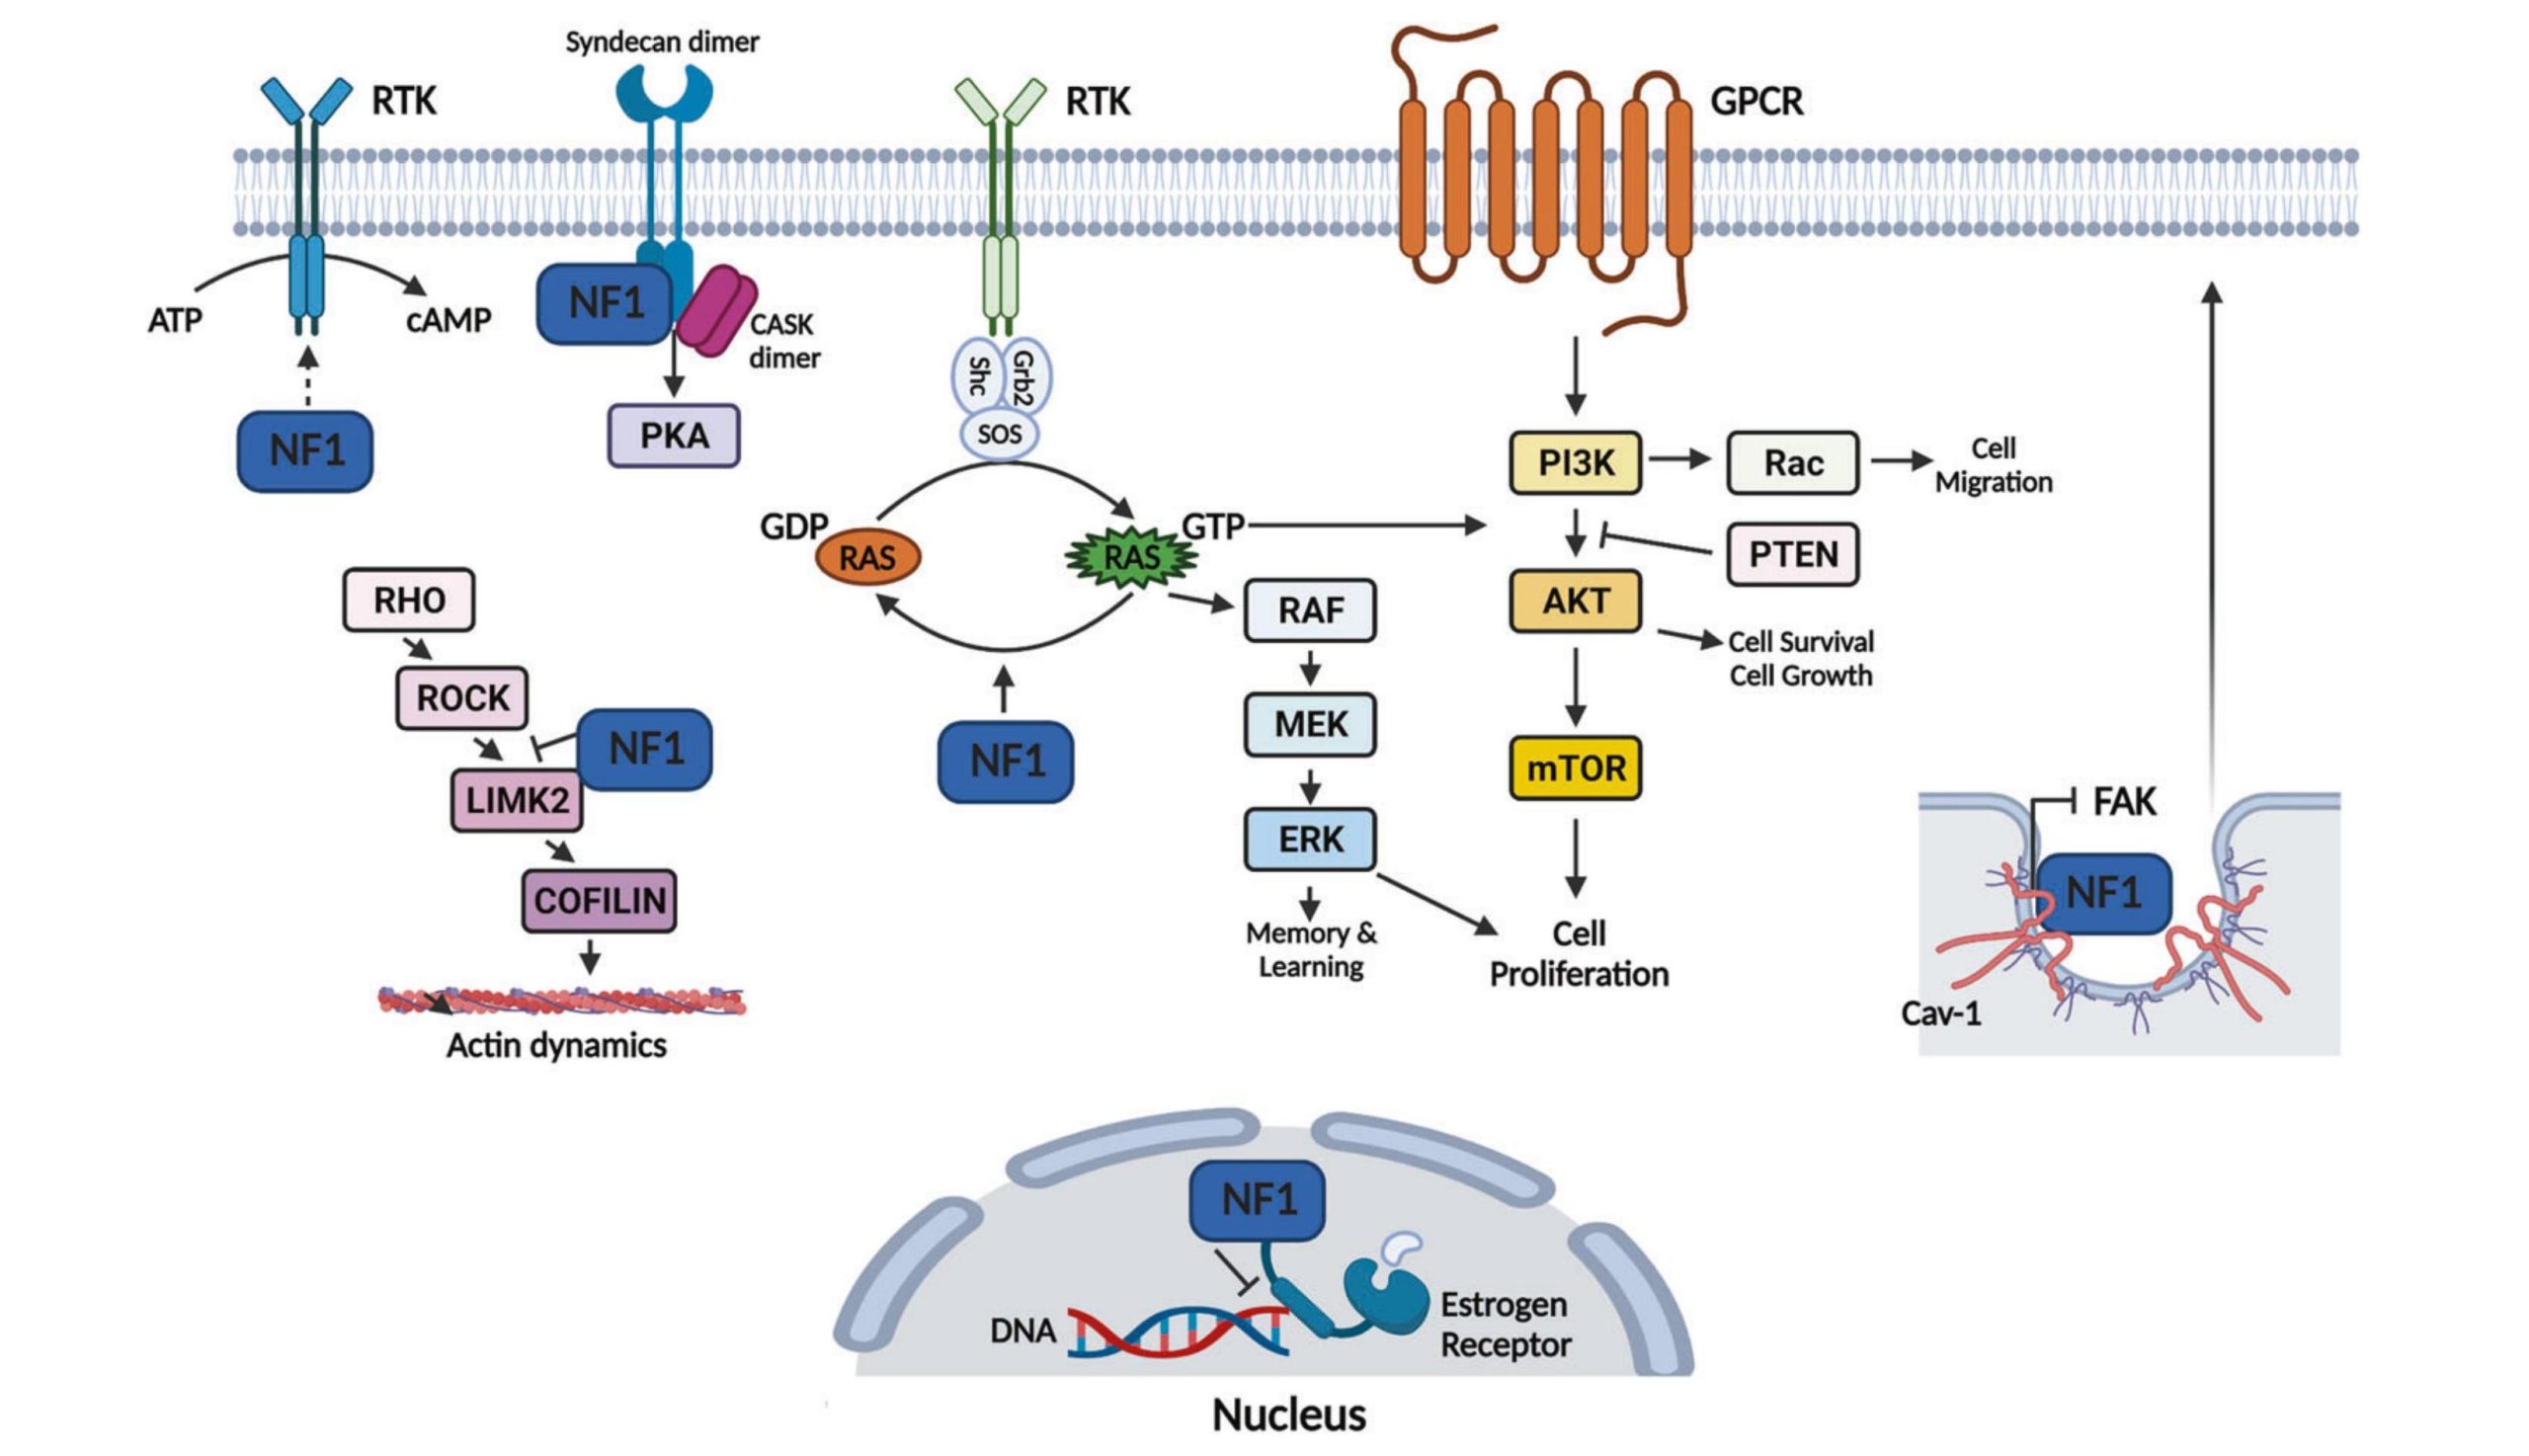
图2. 神经纤维蛋白参与的主要下游信号通路示意图[4]。
GRD以外的结构区域也参与神经纤维蛋白的定位和功能调节,包括半胱氨酸/丝氨酸富集区、微管结合区、Sec14样结构域、PH结构域及C端区域。相关研究将这些区域与膜定位、胞内运输、细胞骨架调节及cAMP信号联系起来[4][5]。此外,全长神经纤维蛋白可形成高亲和力同源二聚体;冷冻电镜研究提出其存在自抑制闭合态和不对称开放态,两种构象可能影响GRD接近RAS[4][5]。
NF1转录本的可变剪接也会改变神经纤维蛋白的功能。外显子23a(又称30alt31)编码的氨基酸片段插入GRD后,RAS-GAP活性约下降10倍。跳过该外显子的异构体主要在中枢神经系统表达;含该外显子的异构体则在多数其他组织中更常见。外显子48a相关异构体见于心肌和骨骼肌发育,外显子9a及10a-2分别与前脑表达及膜定位有关;缺失含核定位信号的外显子43后,蛋白无法进入细胞核[4][5]。
神经纤维蛋白的作用还涉及cAMP稳态和细胞骨架调节。在神经元模型中,其经非经典RAS信号调节G蛋白偶联受体对腺苷酸环化酶的作用,从而影响cAMP生成[3]。不同模型中报告的cAMP变化方向并不完全一致:部分神经元模型中NF1缺失伴随cAMP下降;Nf1突变小鼠施万细胞模型中则观察到cAMP升高[3][4]。2025年综述将NF1缺失后GPCR及RAS/PKC相关通路受扰的结果概括为cAMP降低[5]。神经纤维蛋白还可与LIM结构域激酶2(LIMK2)相互作用,并参与Rho/ROCK/LIMK2/cofilin通路;NF1缺失可使该通路上调,影响肌动蛋白和微管动态及细胞形态[4]。
咖啡牛奶斑和神经纤维瘤等NF1相关表现涉及“二次打击”过程:胚系致病变异构成易感背景,特定细胞谱系中第二等位基因失活是病灶形成的重要分子事件;恶性周围神经鞘瘤的发生还需要其他协同遗传改变[4][6]。丛状神经纤维瘤起源于施万细胞谱系;在中枢神经系统,NF1缺失也会影响神经祖细胞及其微环境[6]。
神经元活动则构成肿瘤微环境中的另一层调节。在NF1相关视神经胶质瘤小鼠模型中,视觉刺激增强视神经活动,促使周围神经元和少突胶质前体细胞释放神经连接蛋白-3(NLGN3);NLGN3经ADAM10剪切后可与肿瘤细胞受体结合并激活PI3K–mTOR通路[7]。在周围神经肿瘤模型中,肿瘤相关的Nf1突变感觉神经元受活动刺激后,RAS-GTP升高并促进COL1A2生成;COL1A2进而刺激Nf1缺失施万细胞增殖,推动丛状神经纤维瘤生长[7]。
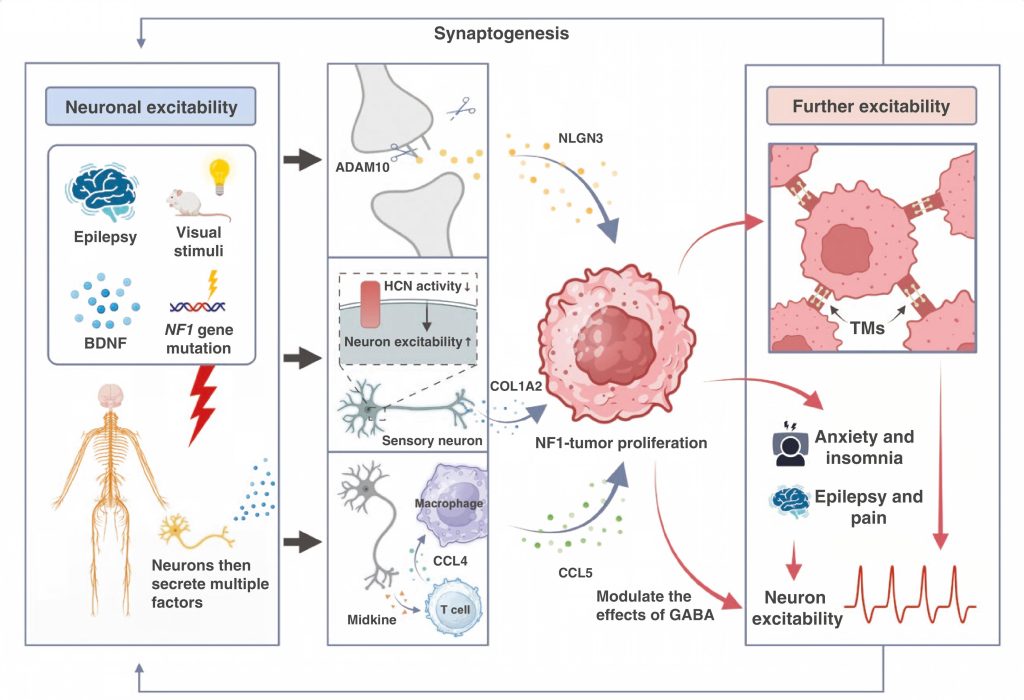
图3. 神经元活动促进NF1相关肿瘤进展,肿瘤细胞增殖又可进一步影响神经过程,形成正反馈循环[7]。
NF1基因检测在临床实践中的应用
临床检测首先用于支持诊断和鉴别。《Ⅰ型神经纤维瘤病临床诊疗专家共识(2021版)》将正常组织(如白细胞)中检出致病性杂合NF1变异、且变异等位基因频率达50%,列为一项诊断标准;无受累父母者需满足两项及以上标准,有受累父母者满足一项即可。若仅见咖啡牛奶斑及腋窝或腹股沟雀斑,还需考虑SPRED1相关Legius综合征[8]。
当临床表现尚不充分时,基因检测可帮助明确分子诊断。《Ⅰ型神经纤维瘤病多学科诊治指南(2023版)》推荐全外显子组测序,条件允许时可进行先证者及父母三人组检测。若结果阴性但临床仍高度怀疑,可进一步评估包括NF1在内的拷贝数变异或进行RNA分析;全身型通常检测外周血或唾液,节段型则需检测病变组织,以寻找血液中可能检不出的合子后变异[9]。《神经纤维瘤病诊疗指南(2025年版)》提出,若检测结果仍为阴性,可考虑采用全基因组测序,并每两年对原始数据进行重分析,以纳入新发现的NF1相关基因或新突变等[10]。《Ⅰ型神经纤维瘤病临床诊疗专家共识(2021版)》所引研究采用基因组DNA、RNA及拷贝数联合分析,报告约97%的NF1致病变异检出率[8]。
解读NF1基因检测结果时,可参考已知的基因型—表型关联,了解特定变异所对应的表型倾向。《神经纤维瘤病诊疗指南(2025年版)》指出,全基因缺失及影响密码子844–848的错义变异与较重表型相关;c.2970_2972delAAT(p.Met992del)及影响Arg1809的错义变异则与较轻表型相关[10]。
遗传检测结果还关系到家系风险评估。《Ⅰ型神经纤维瘤病多学科诊治指南(2023版)》指出,典型胚系NF1致病变异按常染色体显性方式遗传,先证者每次妊娠将变异传给子代的概率为50%;若先证者的致病变异为新发变异,其父母和同胞可能未受影响,但生殖腺嵌合仍使同胞存在患病风险。体细胞嵌合患者的子代患病概率低于50%;若变异传递给后代,后代的临床表现通常更严重;节段型患者的生育风险需结合变异的组织分布判断;指南建议有生育意愿者接受产前遗传咨询[9]。针对NF1相关丛状神经纤维瘤的《丛状神经纤维瘤的全病程管理专家共识(2025版)》也提及备孕前遗传咨询[11]。
总结
NF1研究逐步建立了从基因变异、细胞信号到病变形成的机制链条:神经纤维蛋白的GRD负向调节RAS,蛋白构象、可变剪接及GRD以外区域拓展了这一作用;在特定细胞中发生第二次等位基因失活后,局部信号异常及神经元与肿瘤微环境的相互作用也参与NF1相关病变形成[3][4][6][7]。临床上,基因检测可支持诊断,并为变异解释和家系风险评估提供依据。结果解读需结合变异类型、检测组织与嵌合状态;典型胚系变异和体细胞嵌合或节段型所涉及的遗传风险也应分别评估[8][9][10]。
参考文献:
[1] Feldkamp MM, Gutmann DH, Guha A. Neurofibromatosis type 1: piecing the puzzle together. Can J Neurol Sci, 1998, 25(3): 181-191.
[2] Shen MH, Harper PS, Upadhyaya M. Molecular genetics of neurofibromatosis type 1 (NF1). J Med Genet, 1996, 33(1): 2-17.
[3] Anastasaki C, Orozco P, Gutmann DH. RAS and beyond: the many faces of the neurofibromatosis type 1 protein. Dis Model Mech, 2022, 15(2): dmm049362.
[4] Mo J, Moye SL, McKay RM, Le LQ. Neurofibromin and suppression of tumorigenesis: beyond the GAP. Oncogene, 2022, 41(9): 1235-1251.
[5] Lu Y, Xu M, Chen X, Xu H, Sun N, Weisgerber KE, Bai RY. Neurofibromatosis Type 1: Genetic Mechanisms and Advances in Therapeutic Innovation. Cancers, 2025, 17(23): 3788.
[6] Gutmann DH, Ferner RE, Listernick RH, Korf BR, Wolters PL, Johnson KJ. Neurofibromatosis type 1. Nat Rev Dis Primers, 2017, 3: 17004.
[7] Yu X, Gu Y, Liu J, Huang J, Li Q, Wang Z. Emerging mechanism and therapeutic potential of neurofibromatosis type 1-related nerve system tumor: Advancing insights into tumor development. Neurooncol Adv, 2025, 7(1): vdaf040.
[8] 中国Ⅰ型神经纤维瘤病多中心治疗协作组, 全国整形外科多中心研究平台. Ⅰ型神经纤维瘤病临床诊疗专家共识(2021版). 中国修复重建外科杂志, 2021, 35(11): 1384-1395.
[9] 中国罕见病联盟Ⅰ型神经纤维瘤病多学科诊疗协作组. Ⅰ型神经纤维瘤病多学科诊治指南(2023版). 罕见病研究, 2023, 2(2): 210-230.
[10] 中华人民共和国国家卫生健康委员会. 神经纤维瘤病诊疗指南(2025年版). 中国修复重建外科杂志, 2026, 40(1): 153-160.
[11] 中华医学会整形外科分会神经纤维瘤病学组. 丛状神经纤维瘤的全病程管理专家共识(2025版). 中华医学杂志, 2025, 105(5): 331-345.
TargetCap® Core Exome Panel v3.0
TargetCap@ Core Exome Panel v3.0基于伯科高品质DNA探针合成技术开发,全流程国产制造,由~40万条探针组成,以GRCh38/hg38人类参考基因组设计,参考Refseq、CCDS、ClinVar等数据库,覆盖19,524个基因,目标区域为33.9Mb。
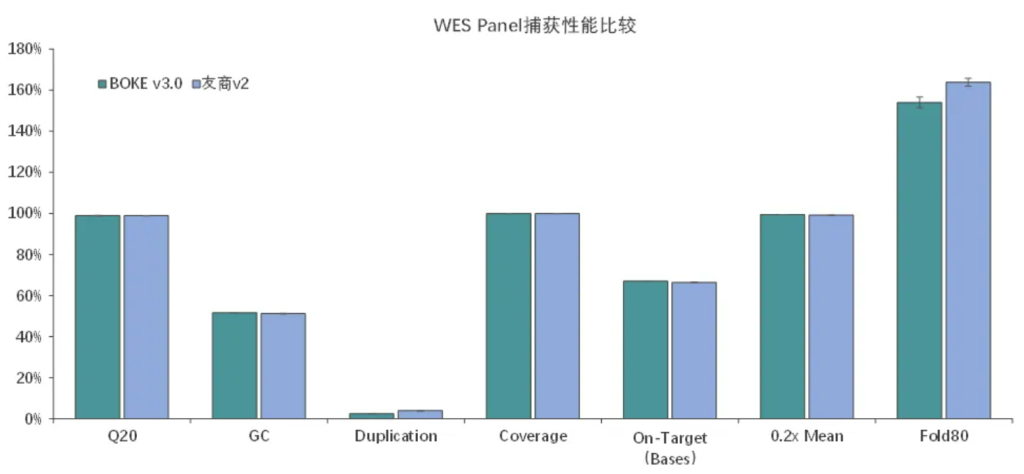
捕获性能比较
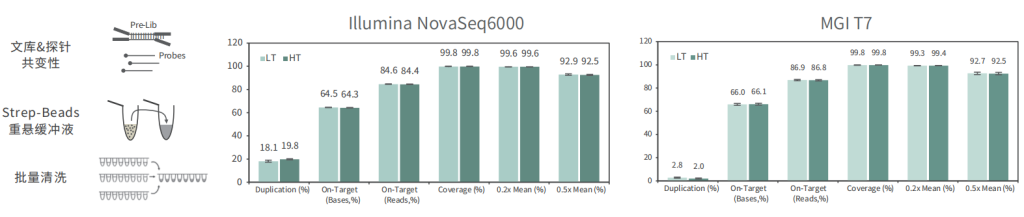
伯科全外芯片v3.0性能优异与国外友商同类型产品v2相当,中靶率、覆盖率、覆盖均一性等参数均达到国际领先水平。
适配高通量流程平台
批次稳定
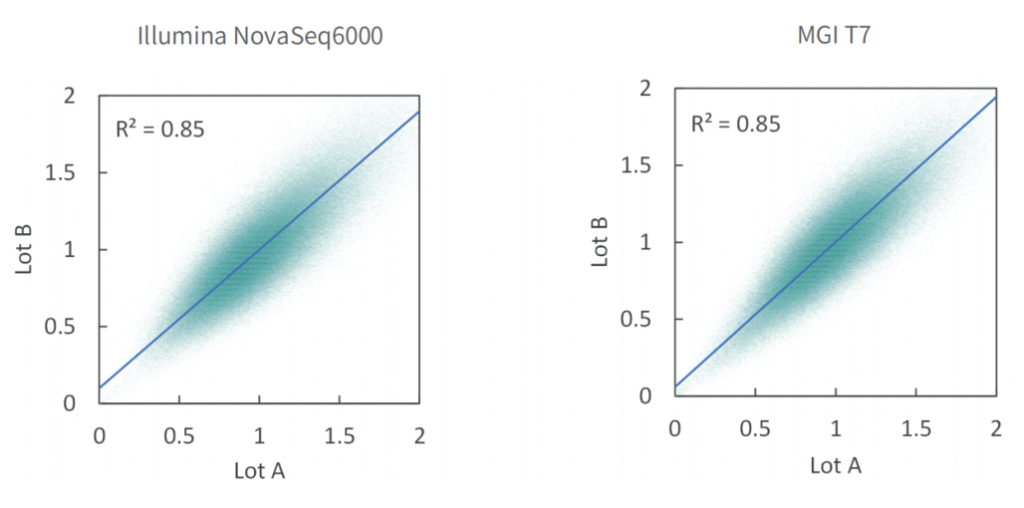
使用不同批次TargetCap® Core Exome Panel v3.0芯片对NA12878 gDNA进行捕获测序,结果显示,不同批次芯片在不同测序平台上均显示出优异的稳定性,不同位点的相对深度相关性高,批次稳定。
变异检测准确
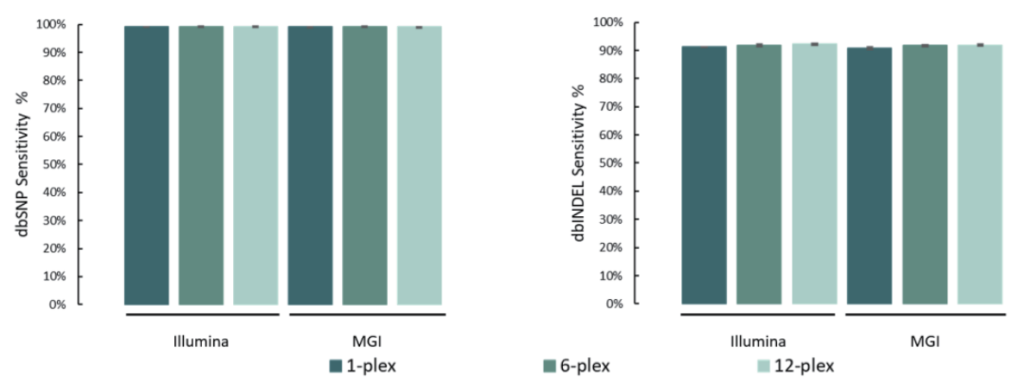
单核苷酸变异(SNV)和插入缺失 (INDEL)是基因组变异的常见形式,也是引起人类疾病的重要原因。
选取NA12878标准品,与预期SNV和INDEL变异进行比较。结果表明,在MGI与Illumina测序平台,SNP灵敏度为99.1%,INDEL灵敏度为91.6%。
添加线粒体模块临床样本表现
20例全血样本(S1#-S20#),采用1-4 Plex方式使用TargetCap® Core Exome Panel v3.0添加线粒体模块进行过夜杂交捕获;其中,S1#-S10#在Illumina NovaSeq X Plus平台测序, S11#-S20#在MGI MGISEQ-T7平台测序,均采用150PE模式测序。得到测序数据后,抽取8Gb数据进行生信分析。
两种测序平台的数据表现相近,平均深度分别为111x/115x (Illumina/MGI),中靶率优异均> 85%,覆盖均一性极佳(0.2X_MD≥99.3%);仅使用8Gb数据,高达98.5%的捕获区域达到了30X以上,99.5%的捕获区域达到20X以上,为临床样本检测提供了可靠的捕获数据。
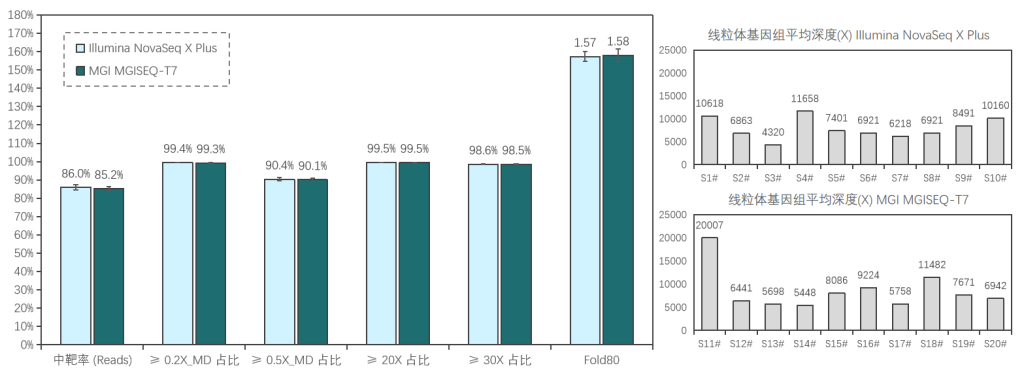
≥0.2X/0.5X_MD: Mean Depth,覆盖深度≥平均深度的0.2/0.5倍深度的区域占总区域的比例,用于表征覆盖均一性性能,越接近100%越好。
TargetCap® Core Exome Panel v7.0
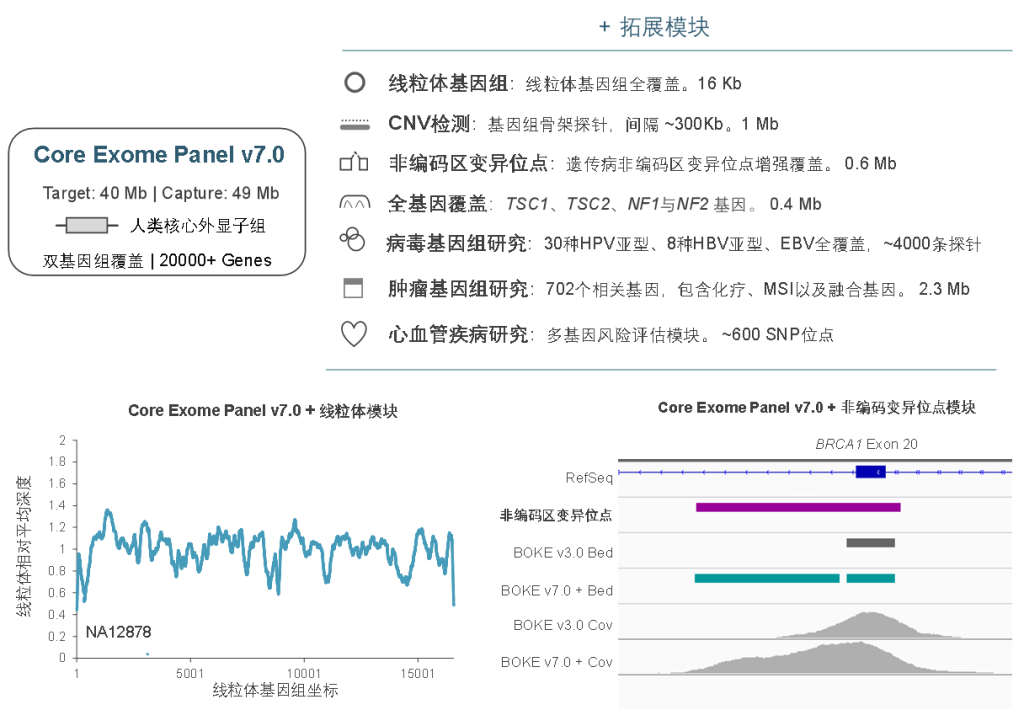
TargetCap® Core Exome Panel v7.0(下文简称BOKE v7.0),该WES Panel增强了基因组hg19传统研究区域的覆盖,兼顾 hg19 & hg38 双版本基因组,可以更好的保证临床科研与转化的延续性。目标区域和捕获区域大小分别为40Mb和49Mb,对 hg19 传统研究区域覆盖提升至99.7%(友商I-v1),hg38传统研究区域覆盖相近(友商A-v8)。同时,新添加数百个具有一定功能与表型的基因,总基因数量达到20000+。
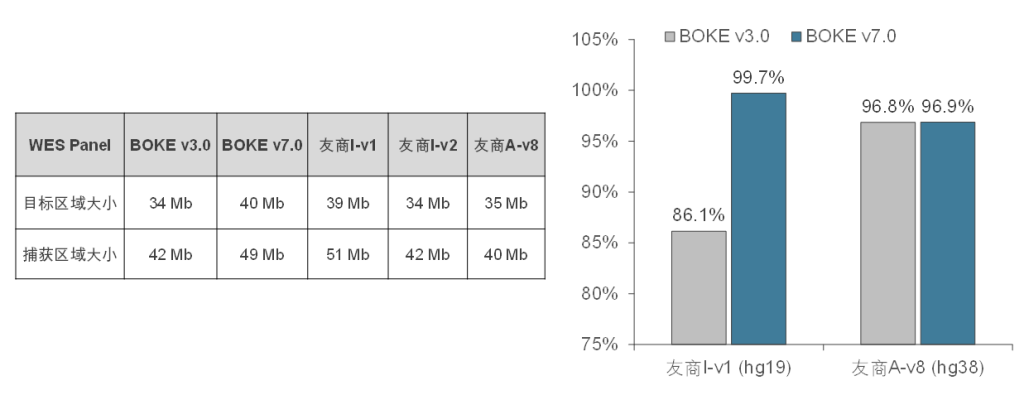
BOKE Core Exome Panel v7.0目标区域大小以及对不同友商产品目标区域的覆盖情况
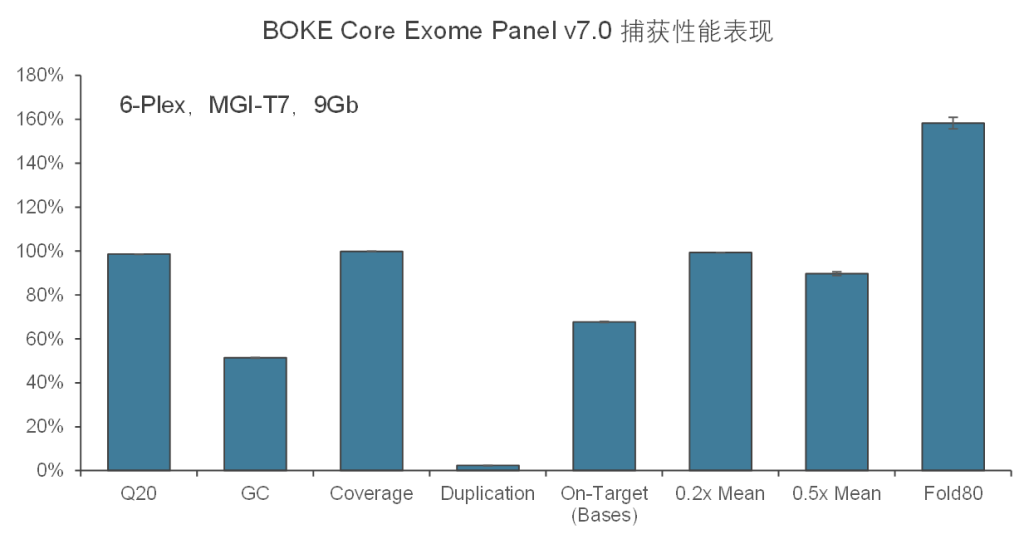
在捕获性能方面,TargetCap® Core Exome Panel v7.0依然表现优异,与TargetCap® Core Exome Panel v3.0表现相近。在测序9Gb条件下,平均深度达到110x左右,20x和30x以上区域占比分别为99.5%和98.5%,Fold 80为1.5-1.6之间,与国际领先产品数据表现相当。
同时,TargetCap® Core Exome Panel v7.0也可灵活的与拓展模块组合使用,满足不同场景的临床研究的需求及转化应用,包括线粒体、遗传病非编码区变异位点、单基因全覆盖、病毒基因组、肿瘤全景变异检测、重大疾病多基因风险评估模块等。此外,伯科公司自研自造的寡核苷酸合成平台可以快速响应个性化定制的需求,为人类基因组分子遗传学的研究与转化,提供更加全面高效的解决方案。